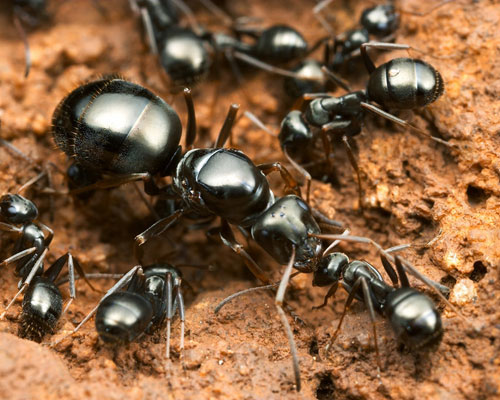
Mravi su insekti iz reda
Hymenoptera. Zajedno sa pčelama i osama spadaju u podred
Aculeata. Do danas je poznato preko 14000 vrsta mrava, a od tog broja zvanično je opisano i imenovano preko 12500. Najveći deo vrsta živi u tropskim delovima Južne Amerike gde su doživeli izuzetnu diverzifikaciju. Mravi spadaju u familiju
Formicidae (za filogenetsko stablo pogledati
pdf), socijalni su insekti i grade složena društva veličine od nekoliko stotina do nekoliko desetina hiljada, pa i stotina hiljada jedinki. Veličina im se kreće od 1 do čak 20 mm. Telo im se sastoji od glave, grudi (engl.
thorax) i trbuha (engl.
abdomen).
Procene su da u svakom momentu na svetu postoji 1 kvadrilion (10
15) (Embery, 1983) jedinki mrava i da kada bi na jedan tas stavili sve ljude, a na drugi sve mrave na planeti tasovi bi bili u ravnoteži. Iz toga vidimo da, i pored njihove male veličine, mravi sačinjavaju veliki deo biomase i značajno utiču na funkcionisanje ekosistema. U njihovim društvima razlikuju se tri osnovne kaste, mada se javljaju i mnoge varijacije. Kao i kod ostalih opnokrilaca nasleđivanje pola je po haplodiploidnom sistemu, po kome su ženke diploidne i nastaju iz oplođenih jaja, a mužjaci su haploidni i nastaju iz neoplođenih jaja. Kastu radnika čine sterilne diploidne ženke. Mnoge vrste mrava imaju polimorfnu kastu radnika, te su neki veći, neki manji i sa različitim oblikom vilica i drugim morfološkim osobinama. Neki su specijalizovani za skupljanje hrane, drugi za negovanje mladih i kraljice, treći za odbranu kolonije. Postoje čak i takvi radnici čija je jedina funkcija da u svom abdomenu koji ima sposobnost izuzetnog proširivanja čuvaju rezerve hrane, tj. slatki biljni sok koji radnici skupe na svojim pohodima.
 |
Uobičajeni životni ciklus mrava
|
Jedina plodna jedinka u koloniji je
kraljica. Kraljice i mužjaci se morfološki jasno razlikuju od radnika, pre svega po prisustvu krila (mada postoje i vrste sa beskrilnim polnim jedninkama). Takođe, polne jedinke su veće, sa krupnijim grudima. Mužjaci imaju nesrazmerno manju glavu u odnosu na grudi koje su uvećane. Imaju jedan tergit više na trbuhu, manje-više isturene genitalije i antene su sa jednim segmentom više u funikulusu. Naravno, postoje i izuzeci kod nekih vrsta koje imaju beskrilne polne jedinke ili se one manje razlikuju od radnika. Neke vrste mrava imaju samo jednu kraljicu u koloniji (
monoginija), dok druge mogu imati po više desetina, pa i stotinu kraljica u zavisnosti od ukupne veličine kolonije (
poliginija).
Polidomija je pojava kada se kolonija mrava sastoji iz više odvojenih gnezda, koja su sva poreklom nastala od jednog. Neke vrste formiraju takozvane superkolonije, koje su sačinjene od mnogo pojedinačnih kolonija, koje nastaju fisijom (deljenjem) drugih kolonija, kada kraljica sa delom radnika napušta matičnu koloniju i zasniva novu na pogodnom mestu. Nasuprot tome imamo
monodomiju kada kolonija ima samo jedno gnezdo.
Kraljica nakon prelaska u adultni stadijum i nakon kratkog perioda koji provede u matičnoj koloniji, izleće na svadbeni let, nalazi mužjaka i pari se s njim. Nakon parenja mužjaci vrlo brzo uginu, a kraljice na pogodnom mestu koje pronadju osnivaju novu koloniju. Nakon parenja kraljica odgriza sopstvena krila, jede ih radi pribavljanja energije, jer se neće hraniti dok god ne izvede prvu generaciju radnika iz jaja koja izleže u novoosnovanoj koloniji. Takođe, energiju dobija i iz sada nepotrebnih krilnih mišića i dela jaja koje pojede nakon izleganja. Nakon izleganja radnici će početi da nabavljaju hranu i grade koloniju.
Pojam socijalnog parazitizma
Pre svega, potrebno je definisati pojam socijalnog parazitizma. Po definiciji koju su dali Hölldobler i E.O.Wilson (
1990) socijalni parazitizam je koegzistencija dve vrste socijalnih insekata u istom gnezdu, od kojih je jedna parazitski zavisna od druge. Ova zavisnost se ogleda u
skloništu koju dobija u gnezdu domaćina, ishrani, nezi potomaka, održavanju gnezda, nabavljanju hrane i druge poslove koje vrše mravi domaćini u ovom parazitskom odnosu. Neki autori u ovaj tip odnosa svrstavaju intraspecijski parazitizam, autoparazitizam, parazitizam solitarnih vrsta životinja na socijalnim, ali ove pojave se ne mogu svrstati u socijalni parazitizam, jer on podrazumeva kompleksan odnos između dve različite vrste socijalnih insekata (mrava) koje stupaju u složenu interakciju.
Neki autori zastupaju pojam intraspecifičkog parazitizma, ali ova pojava se ne može svrstati u socijalni parazitizam, jer se napadi sa otimanjem mladih iz konspecifičkih kolonija javljaju sporadično kod mnogih vrsta i ne uključuju interakciju između dve socijalne vrste kakvu imamo kod socijalnog parazitizma u pravom smislu. Ni autoparazitizam koji je definisao
Bolton (1986), pojava kada mlada kraljica nakon parenja odlazi u konspecifičku koloniju, gde eventualno biva prihvaćena, negovana od strane radnika i kasnije fisijom stvara nove kolonije, ne spada u socijalni parazitizam. Ovde se u slučaju polidomnih kolonija radi o recipročnom (a ne parazitskom) odnosu, jer kolonija koja u jednom slučaju ima ulogu „domaćina“ u drugom će sama davati kraljice koje na drugim kolonijama „parazitiraju“. Sustanari u gnezdu mrava kao što su vaši, nematode, bube i drugi takođe se ne mogu smatrati socijalnim parazitima, jer ovo ne podrazumeva odnos između dve različite socijalne vrste koje stupaju u složene interakcije. U ovom radu će detaljnije biti obrađen samo trajni parazitizam sa robovlasništvom -
dulosis.
Učestalost i sistematska distribucija parazitskih vrsta mrava
Među dosad opisanih 12679 vrsta mrava (Agosti i Johnson, 2009) uz još 1500 koje čekaju formalni opis i imenovanje, njih
230 su parazitske. Većina su retke i teško se zapažaju, pa je zbog toga njihov broj verovatno veći i mnoge će tek biti otkrivene. Distribucija po subfamilijama je vrlo neujednačena i većina vrsta su iz
Formicinae (9 od 25 rodova) i
Myrmecinae (33 od 139 rodova). Neki rodovi su čisto parazitski:
Aenergates, Bothriomyrmex, Chalepoxenus, Formicoxenus, Harpagoxenus, Myrmoxenus, Polyergus, Protomognathus, Strongylognathus, Teleutomyrmex (Buschinger, 2009). Nejasno je zašto su neke vrlo brojne subfamilije potpuno bez parazitskih vrsta, a na primer rod
Camponotus sa 1500 vrsta ima samo jednu parazitsku-inkvilinsku vrstu
C. universitatis (Tinaut i sar., 1992).
Sva četiri osnovna tipa socijalnog parazitizma se javljaju u subfamilijama
Formicinae i
Myrmicinae, u
Pseudomyrmicinae i
Dolichoderinae (
Botriomyrmex) se javlja privremeni tip, a u
Myrmeciinae inkvilizam (Buschinger, 1986). Socijalni parasitizam je očigledno ređi u tropima nego u umerenim zonama iz još neutvrđenih razloga. Jedan od primera socijalnog parazitizma u tropima je vrsta
Megalomyrmex symmetochus koja je parazit u gnezdima vrste mrava krojača iz roda
Trachymyrmex i hrani se mladima i gljivama koje mravi domaćini uzgajaju.
 |
Parazitski mrav Megalomyrmex symmetochus (manji) sa svojim domaćinima
iz roda Trachymyrmex u gnezdu (bašti gljiva) domaćina. |
Socijalni parazitizam se može javiti u više tipova. Postoje 4 osnovna vida socijalnog parazitizma kod mrava: privremeni socijalni parazitizam (
ksenobioza), trajni sa robovlasništvom (
dulosis) i trajni bez robovlasništva (
inkvilizam). Pregled socijalnog parazitizma dat je po Buschinger-u (2009):
Ksenobioza
Ksenobioza je vid socijalnog parazitizma kada je mrav "gost" obligatno vezan za domaćina. Odnos se sastoji u tome da paraziti žive u koloniji domaćina, koristeći ga za pružanje skloništa i ishranu. Mravi paraziti sami brinu o svom potomstvu i u tom smislu ne zavise od domaćina, za razliku od ostalih tipova socijalnog parazitizma. Domaćin i parazit uglavnom nisu blisko srodne vrste i dešava se da su čak iz različitih subfamilija. Ksenobioza je mogući prekursor inkvilizma, o kome će biti reči dalje u tekstu. Zabeležena je u tri roda
Formicoxenus,
Polyrachis i
Megalomyrmex.
Formicoxenus pravi male kolonije od po oko stotinak individua u gnezdima krupnijih vrsta sa dosta većim kolonijama (
Formica,
Myrmica,
Manica), drži se odvojeno od glavnine domaćina, zauzimajući skrajnute galerije. Zavise od domaćina za sklonište i hranu (uzimajući je direktno od radnika domaćina koji ih hrani ili učestvujući u razmeni između dva radnika -
trophilaxis).
Privremeni parazitizam
Privremeni parazitizam je kako mu i ime kaže prolaznog karaktera, ovakav vid interakcije između dve vrste se javlja samo u vreme zasnivanja nove kolonije, tj. dok se mrav parazit nalazi u fazi osnivanja kolonije. Kraljica parazitske vrste nakon svadbenog leta ulazi u koloniju pogodne vrste domaćina, ubija ili izbacuje kraljicu i leže jaja koja neguju radnici domaćini. Vremenom broj radnika parazita raste, a broj domaćina se usled starenja i umiranja smanjuje (jer nema kraljice koja bi izlegla jaja i nove radnike), ostavljajući na kraju samoodrživu koloniju parazita.
 |
Robovlasnička jedinka (Lasius claviger) uspostavlja novu koloniju tako što se probija unutar kolonije
domaćina i ubija njegovu kraljicu. Fotografija Alex Wild (www.alexanderwild.com). |
Kraljice vrste
Lasius umbratus pre ulaska u koloniju domaćina na ulazu sačekaju radnika koga ubijaju i sažvaću, primajući time miris kolonije i postajući atraktivnije radnicima od domaće kraljice koja ili vremenom umire od gladi ili biva izbačena iz kolonije. Srodna vrsta
L. alienus napada znatno veću domaću kraljicu i davi je do smrti (Faber, 1967). Kraljice
Bothriomyrmex sp. tokom preuzimanja kolonije odsecaju glavu domaće kraljice. Postoje i slučajevi
superparazitizma, npr. kada kraljica
L. fuliginosus zasniva koloniju u gnezdu
L. umbratus koja je takođe privremeni parazit vrste
L. niger i sličnih (Seifert, 2007). Ponekad više kraljica odjednom invadira koloniju domaćina. Članovi
Formica rufa grupe su vrlo moguće svi privremeni paraziti ili na članovima podroda
Serviformica ili na konspecifičkim gnezdima, kada kasnije pupljenjem formiraju superkolonije.
Trajni parazitizam sa robovlasništvom (dulosis)
Robovlasništvo je tip socijalnog parazitizma kod mrava kod koga parazit trajno zavisi od već ustanovljenih kolonija srodnih vrsta mrava za sve zadatke koji se obavljaju u koloniji (Buschinger, 1986; Hölldobler i Wilson, 1990; Stuart, 2002).U ovom tipu domaćini se nalaze u mešovitom gnezdu zajedno sa parazitima tokom celog trajanja kolonije, ne samo pri osnivanju. Nastao je u minimum 9 odvojenih linija, u dve subfamilije mrava
Formicinae i
Myrmicinae, sa najvećom koncentracijom vrsta u dva tribusa:
Formicini, odnosno
Formicoxenini (D’Ettorre i Heinze, 2001).
Kolonije robovlasnika se obično osnivaju u leto od strane mlade oplođene kraljice koja nakon svadbenog leta ulazi u koloniju domaćina. Početak osnivanja parazitske kolonije može teći tako što mlada oplođena kraljica ulazi u koloniju pogodne vrste mrava robova, nalazi kraljicu (ili kraljice ukoliko je u pitanju poligina kolonija) i ubija je ili izbacuje iz kolonije i preuzima kontrolu nad radnicima mehanizmima o kojima će biti više rečeno dalje u tekstu. U nekim rodovima kraljica će sem kraljice izbaciti iz kolonije i sve odrasle radnike. Kod nekih vrsta kraljica će pre ulaska u koloniju prvo neko vreme provesti ispred ulaza i nakon kontakta i sukoba sa radnicima iz kolonije domaćina poprimiće miris kolonije, što će joj olakšati ulazak u koloniju i smanjiti agresiju radnika domaćinske vrste.
 |
Radnici robovlasničke kolonije Formica subintegra se vraćaju u svoj mravinjak
noseći otete pupe budućih mrava robova |
Neke kraljice imaju sposobnost lučenja specifičnih supstanci iz Duforovih žlezda koji imaju efekat smanjenja nivoa agresivnosti radnika domaćina i time olašavaju infiltraciju. Kraljica počinje da leže jaja o kojima brinu radnici domaćini, neguju ih i hrane, i vremenom počinje izleganje novih mrava robovlasnika. Radnici domaćina će se nakon izleganja iz jaja i larvi (oniih koji su preostali nakon upada nove kraljice), brinuti o novoj kraljici i njenom potomstvu. Vremenom radnici robovi umiru, a pošto više ne postoji kraljica domaćinske vrste koja bi leganjem novih jaja obnavljala brojnost radnika, onda je potrebno radnu snagu nadomestiti na neki drugi način. Zato mravi robovlasnici napadaju kolonije vrsta koje su pogodne kao robovi, otimaju jaja i larve i nose ih nazad u svoje gnezdo. U njemu jaja i larve različitim mehanizmima postaju potpuno integrisane u mravlje društvo robovlasničke vrste. Nakon izleganja oni će obavljati poslove negovanja mladih, donošenja hrane, odbrane gnezda, brige o kraljici, ishrani robovlasnika,itd. Ponekad će čak učestvovati i u novim napadima na druge kolonije bilo sopstvene ili neke druge vrste mrava robova.
Ima li otpora unutar kolonije robova prema robovlasnicima ?
Kada parazitska vrsta mrava Protomognathus americanusa izabere i napadne koloniju Temnothorax longispinosus , ona pobije sve odrasle jedinke u njoj a zatim ukrade i odnese njihove potomke u svoj mravinjak gde ih prisiljava da hrane i vode brigu o njihovim larvama. Na ovaj način mravi robovi vode brigu o larvama svog sopstvenog okupatora.
Medjutim, novije istraživanje (cela studija) pokazuje da porobljeni Temnothorax longispinosus radnici, povremeno prave "pobune" u kojima ubijaju larve svojih okupatora, to jest, larve Protomognathus americanus. Na ovaj način, kontrolišući rast njihove populacije mravi robovi održavaju broj svojih okupatora, smanjuju i broj pobuna i time utiču na povećanje fitnesa obe vrste. Ostala slična istraživanja govore da je ovo ponašanje prisutno i kod ostalih kolonija insekata sa oblicima socijalnog parazitizma i robovlasništvom.
Ono što je posebno zanimljivo, Protomognathus americanusa ne napada svaku koloniju na koju naidje. Oni imaju specijalne izvidjače koji pažljlivo biraju kolonije Temnothorax mrava koje treba napasti. Pri tom izboru, ne biraju slabo branjene, već suprotno - kolonije koje su najbolje branjene.
Naučnici koji su pokušali da istraže ovo ponašenje došli su do toga da su Protomognathus americanus vodjeni potrebom da im budući robovi budu što jači i otporniji kako bi bolje brinuli o njihovim larvama.
|
U nekim rodovima svi radnici domaćina bivaju ubijeni nakon upada (
Chalepoxenus,
Harpagoxenus). Radnici robovlasnici su obično nesposobni da samostalno obavljaju zadatke u gnezdu, ali su mnogi od njih razvili različite adaptacije koje ih čine izuzetnim borcima.
Polyergus (
Formicinae) i
Strongylognathus (
Myrmicinae) imaju specijalne mandibule koje lako probijaju oklope napadnutih mrava.
Harpagoxenus sublaevis imaju bezzube mandibule kojima lako odsecaju ekstremitete. Neke vrste imaju snažne žaoke (
Chalepoxenus, Myrmicinae) ili agresivne sekrete ili supstance (
Raptiformica) koje služe kao sredstva smanjivanja agresije napadnutih mrava ili kao sredstva zbunjivanja.
Obligatno i fakultativno robovlasništvo
Fakultativno robovlasništvo se javlja na primer kod vrste
Formica subnuda i
F. sanguinea i kod njega vrsta robovlasnik može opstati i samostalno ako treba. Robovi (ako su prisutni) čine samo 10% ukupnog broja radnika u koloniji. Nisu svu robovlasnici podjednako uspešni u porobljavanju. Tako na primer
F. subnuda uspeva da pokori samo male, mlade kolonije domaćina. Oni se suočavaju sa velikim otporom domaćina, pa napadi traju satima i smrtnost je velika kako među domaćinima tako i napadačima.
Obligatno robovlasništvo se javlja, pored ostalih, i kod vrste
Polyergus rufescens. Kod obligatnog tipa robovlasništva vrsta robovlasnik ne može opstati bez robova, pošto su radnici izgubili sposobnost da sami obavljaju poslove pribavljanja hrane, odgoja mladih i sl. Robovi čine preko 90% ukupnog broja radnika u koloniji. Oni mogu uspešno napadati i velike kolonije i ostvariti veći broj robova. Njihova efikasnost povećana je specifičnim adaptacijama kao što su uvećane žlezde sa specifičnim sekretima različitih funkcija i srpaste mandibule. Žlezdani sekreti koji se luče tokom napada smiruju radnike napadnute kolonije ili ih okreću jedne protiv drugih, čime se smanjuje agresija prema napadačima. Radnici koji pruže otpor brzo se imobilišu brzim bušenjem glave ili tela mandibulama. Ovako adaptirane mandibule sjajne su za borbu, ali čine mrave robovlasnike nesposobnim za svakodnevne poslove radnika, pa su za opstanak kolonije neophodni robovi. Zrele kolonije zato moraju da se snabdeju sa minimum 6000 robova svake sezone, kako bi obezbedili dovoljno radne snage (Savolainen & Deslippe 1996).
Faklultativno robovlasništvo predstavlja važnu temu u izučavanju socijalnog parazitizma, jer je ono karika između slobodno-živećih vrsta i obligatnih parazita.
F. sanguinea je iz tog razloga zanimljiva jer predstavlja nešto između trajnog i privremenog parazitizma, njene kolonije se često mogu naći i bez prisustva robova, a plen jaja, larvi i lutaka iz pohoda često biva pojeden, a ne ostavljen da se iz njih izlegu radnici robovi.
Trajni parazitizam bez robovlasništva (inkvilizam)
U ovom tipu odnosa parazitske kraljice ulaze u gnezda domaćina, nalaze pogodno mesto (uglavnom skriveno unutar gnezda) i tu započinju stvaranje svoje kolonije. Parazitska vrsta uglavnom nema radnike, već kraljica ulaže samo u proizvodnju seksualnih jedninki. Njihova strategija se sastoji u izleganju što većeg broja polnih jedinki, a manje radnika. Radnici domaćina neguju kako jaja sopstvene vrste tako i jaja parazita. Smatra se da je prekursor za nastanak inkvilizma bila
ksenobioza. Naime, kod nje imamo mrave parazite u gnezdu domaćina koji proizvode radnike i o njihovim jajima brinu domaćini. Domaćini obezbeđuju i negu i hranu podmlatku, tako da se može izvesti zaključak da je vremenom došlo do nestanka (nepotrebne) radničke kaste i specijalizacije za stvaranje isključivo polnih jedinki.
Može se napraviti podela na kraljica-tolerantne i kraljica-netolerantne inkviline.
Kraljica-netolerantni inkvilini ili ulaze samo u kolonije bez kraljice (
Anergates atratulus) ili ubijaju kraljicu po ulasku (
Leptothorax gosewaldi i neke vrste rodova
Myrmecoxenus i
Chalepoxenus koje su po nekim autorima ustvari degenerativni robovlasnici). Većina vrsta spada u
kraljica-tolerantne inkviline koji ne ubijaju kraljicu domaćinske vrste, već žive u koloniji bez većih sukoba sa domaćinima.
Podela se može sprovesti i po nivou anatomskih promena:
Anergates atratulus i
Teleutomyrmex sp. su pretrpele znatnu specijalizaciju i anatomske izmene (duga evolucija) i predstavnici su onoga što je Wilson (1984) opisao kao
anatomski parazitski sindrom. Druge kao što su
Plagiolepis sp. i još neki, su manje izmenjene. Samo su manje u veličini i imaju izraženiji polimorfizam među kraljicama i mužjacima. Mnoge se teško razlikuju od domaćina (npr.
Leptothorax sp. od domaćina
L. acervorum). Ponekad se mogu i dve vrste parazita naći u istoj koloniji domaćina. Inkvilizam je najčešći oblik socijalnog parazitizma. 2005.god. je otkrivena i prva vrsta socijalni parazit iz poneroidnog kompleksa podfamilija, gde dosad nije zabeležen nijedan vid socijalnog parazitizma (
Ectatoma parasiticum).
Ekstremni slučaj ovog tipa parazitizma se javlja kod takozvanog ultimativnog parazita - švajcarskog mrava
Teleutomyrmex schneideri koji ima izuzezno konkavan abdomen i duge tarzalne kandže što mu omogućava da ceo svoj život provede zakačen za leđa ili ventralnu stranu toraksa kraljice domaćina, slično ektoparazitu (Kutter, 1968).
Neke vrste socijalnih parazita zastupljene u Srbiji
Kao što smo već naveli od oko 12500 vrsta mrava samo mali broj učestvuje u socijalnom parazitizmu, bilo kao paraziti bilo kao domaćini. U celom svetu se javlja oko 70 vrsta mrava robovlasnika u oko 10 rodova iz dve podfamilije. Među tim vrstama u Srbiji su dosad zabeležene oko 5 vrsta, a to su najčešće :
Formica sanguinea i
Polyergus rufescens. Ove vrste su fakultativni, odnosno obligatni robovlasnici, a kao robovi služe im različite vrste prvenstveno iz podroda
Serviformica.
Formica sanguinea
Mravi
sanguinea grupe (istorijski nazvani "
Raptiformica") su socijalni paraziti. Oni periodično i organizovano napadaju kolonije drugih
Formica vrsta radi otimanja mladih, koji nakon sazrevanja služe kao radnici. Različite su zavisnosti od robova, neki su fakultativni, a neki obligatni robovlasnici (
F. subintegra).Mravi ove grupe imaju medijalni usek na klipeusu i ovaj karakter služi za njihovo identifikovanje. Na terenu, njihova gnezda su uglavnom mešovitog sastava, sadrže jedinke
sanguinea grupe i njihove robove. U jednoj populaciji
F. pergandei zabeležene su jedinke vrsta robova
F. fusca, F. subsericea, F. neogagates, F. lasioides i
F. nitidiventris, ponekad čak svih u istom gnezdu.
Formica sanguinea mrav naseljava centralnu i severnu Evropu, Rusiju, Kinu, Koreansko poluostrvo i Japan). Fakultativni je robovlasnik. Dvobojan je - toraks i petiolus su crveni, a ostatak tela tamnije braon, siv do crn. Radnici su veličine do 7 mm. Naseljava uglavnom otvorena staništa. Kao fakultativni robovlasnik može formirati samostalne kolonije, ali takođe i porobljavati druge vrste uglavnom pripadnike istog roda.
 |
| Formica fusca (potpuno crni mravi) i F. sanguinea (dvobojni) u mešovitoj koloniji. |
Parazitira na vrstama
Formica fusca (podred
Serviformica) i njenim rođacima (
lemani, candida, rufibarbis, cunnicularia),pa čak i na mnogo jačim crvenim šumskim mravima (
F. rufa, aquilonia, lugubris, pratensis i
exsecta). U našim predelima najčešće parazitira na vrsti
Formica fusca. Druge vrste kao što su
Lasius niger,
L. flavus, Myrmica scabrinodis i
M. rugidnodis će takođe biti pljačkane ali samo u jako retkim slučajevima će se desiti da kao adulti služe kao robovi, verovatno zbog nekompatibilnosti u komunikaciji.
Formica fusca je uobičajeni crni mrav Evrope, njena gnezda se obično nalaze u trulim panjevima ili ispod kamenja u čistosečenim delovima šume i duž granica šuma i živice. Kolonije su poligine i gnezda su obično mala do 2000 radnika. Radnici su veliki od 8-10 mm, brzi i plašljivi, ako se uznemiri gnezdo brzo će pobeći u zaklon. U veštačkim uslovima ih je zbog toga teško izučavati, jer ovako reaguju i na najmanje vibracije, kao što je podizanje poklopca kontejnera. Hrane se malim insektima, mednim sokom sa biljnih vaši i sličnim.
Formica fusca je najuobičajeniji rob većini robovlasničkih vrsta u Evropi.
Opis mrava : Formica sanguinea

Identifikacija
Na prvi pogled Formica sanguinea je slična sa Formica rufa. Može se razlikovati po sjajnoj crvenoj glavi i toraksu i sivom abdomenu. Mali radnici su tamniji i teže se razlikuju od F. rufa. Formica sanguinea
je brz mrav i ne savija abdomen ispod zadnjih nogu kada prska mravlju
kiselinu, kako to čini većina ostalih šumskih mrava. To je jedina vrsta
kojoj udubljenje između mandibula služi u svrhu borbe. Radnici dostižu
veličinu od 10 mm i više kada su uslovi povoljni.
Ishrana
F. sanguinea
je predator insekata, hrani se i raznim slatkim supstancama koje nađe,
skuplja medni sok sa biljnih vaši. U svojim pohodima na mlade drugih
vrsta radi ishrane i radne snage napada različite vrste roda Formica: F.
fusca, lemani, candida, rufibarbis, cunnicularia, rufa, aquilonia,
lugubris, pratensis i exsecta. Najčešće, F. sanguinea će jaja, larve i
lutke odneti nazad u svoje gnezdo i hraniti se njima.
Stanište
Preferira
peskovita, osunčana staništa, posebno trula debla na granici
četinarskih šuma. Kolonije dostižu veličinu od 10000 jedinki, dok u
laboratorijskim uslovima mogu dostići preko 20000. U gnezdima se pored
toga obično nalazi isti toliki broj jedinki robova. Pred zimu preseljava
gnezdo u gušće lišće što umanjuje efekat mraza i vlage.
Napadi (racije)
Izviđači
izlaze tokom jula i avgusta i pretražuju teren za gnezdima koja bi
napali. Ostavljaju feromonske tragove koje pseudo izviđači, koji posle
njih izlaze iz gnezda, mogu da prate i time sve više radnika polazi ka
napadnutom gnezdu. Pri napadu formiraju odvojene grupe koje prilaze meti
sa suprotnih krajeva. Često je okružuju sa svih strana gnezda. Napadnuta
kolonija (zavisno od vrste) odgovara izlaskom hiljada jedinki iz gnezda
koje formiraju odbrambeni obruč. Kada je meta gnezdo vrste F. fusca
onda će napadati sa svih strana, a kada su u pitanju F. rufa obično
snažno napadaju sa strane suprotne položaju njihovog gnezda i
pozicioniraju značajne snage na potezu između dva gnezda na nekom
odstojanju od napadnutog gnezda. Kada napad počne radnici F. rufa
počinju evakuaciju mladih iz gnezda, beže sa što je više moguće svog
potomstva i to u pravcu baš ovih snaga (jer je to jedini otvoreni put)
koje onda lako otimaju mlade malobrojnim preostalim jedinkama. Kraljica
F. sanguinea. nakon parenja se može vratiti u matičnu koloniju i
pridružiti se sledećem napadu na gnezda domaćina, pri čemu će nakon
napada ostati u njemu i osnovati novu koloniju. Paniku tokom napada
iskoristiće da lako dođe do kraljice domaćina i ubije je.
|
Polyergus rufescens
Polyergus rufescens je vrsta submediteranskog rasprostranjenja. Smeđe je boje i radnici su veličine od oko 5-10 mm. Za razliku od
F. sanguinea on je obligatorni robovlasnik. Kod njega se sem interspecijskog robovlasništva na
F. fusca javlja i intraspecijsko robovlasništvo na drugim konspecifičkim gnezdima. U jednom radu (Moli, 1993) zabeležene su 4 intraspecifička napada na 3 kolonije
P. rufescens tokom toplih sunčanih popodneva. Generalno, nije bilo sukoba između napadača i napadanih, i otimanje mladih trajalo je samo par minuta. Mladi su prebačeni u laboratorijske uslove gde su bili prihvaćeni od strane mešovite kolonije sačinjene od parazita i domaćina. Ovo je bio prvi zabeleženi slučaj funkcionalnog intraspecifičnog ropstva kod
P. rufescens.
Formica rufa
Mravi
Formica rufa grupe su veliki, agresivni i dominantni mravi u severnoj hemisferi. Evropske vrste spadaju u neke od retkih primera zakonski zaštićenih vrsta mrava zbog njihovog značaja u kontroli insekata štetočina šuma. Mnoge vrste
rufa grupe grade velike kolonije izgrađene od trave i najčešće su privremeni socijalni paraziti nad
F. fusca grupom.
Formica rufa je česta vrsta u četinarskim i listopadnim šumama, radnici dostižu veličinu do 10 mm. Imaju velike mandibule i kao i mnogi drugi šumski mravi špricaju mravlju kiselinu iz abdomena u odbrani.
 |
| Šumski mravi Formica rufa špricaju mravlju kiselinu iz abdomena u toku odbrane |
Formica rufa je primarno predator, uglavnom se hrani insektima i drugim beskičmenjacima, posebno biljnim vašima sa okolnog drveća, toliko da se u nekim slučajevima u šumarskoj industriji koristi kao biološka kontrola štetočina. Gnezda su joj obično na šumskim proplancima gde mogu biti obasjana suncem. Mogu dostići veličinu i do nekoliko metara u visinu i širinu. Izrazito su poligini i često re-usvajaju mlade oplođene kraljice nakon svadbenog leta što dovodi do starih, više-galerijskih kolonija koje mogu da sadrže i preko 100 kraljica. Agresivno je teritorijalna i često napada i premešta druge vrste. Svadbeni letovi se dešavaju u proleće i često su praćeni žestokim bitkama između susednih kolonija u vreme ustanovljavanja novih teritorijalnih granica. Ova vrsta može nove kolonije da ustanovljava i putem privremenog socijalnog parazitizma, kada joj kao domaćini služe pripadnici
Formica fusca grupe, najčešće
F. fusca i
F. lemani, iako su kolonije u začetku
F. rufa nalažene i u kolonijama
F. glebaria, F. cunnicularia i sličnim vrstama uključujući i rod
Lasius.
Komunikacija parazit-domaćin
Pri ulasku u koloniju domaćina, kraljice parazita su sposobne da upotrebe mehanizme međusobnog prepoznavanja radnika (pomoću hemijskih stimulusa) u sopstvenu korist i da njihovo altruističko ponašanje usmere ka njoj i njenim potomcima, a ne njihovim srodnicima iz gnezda. Mehanizmi kojima se kraljice paraziti služe jesu kamuflaža i mimikrija.
Kamuflaža predstavlja usvajanje hemikalija domaćina putem socijalne interakcije, kako pasivne (slučajnim kontaktom sa domaćinima i supstratom iz gnezda) tako i aktivnom (negovanje od strane radnika i trofalaksis).
Mimikrija je nasuprot tome biosinteza hemikalija specifičnih za domaćinsku vrstu. Kamuflaža i mimikrija se često zajedno primenjuju. Mimikrija može biti nepotpun vid prepoznavanja sa domaćinima jer se neke hemikalije domaćina menjaju od kolonije do kolonije, pa se samo kamuflažom može steći pravi miris baš te kolonije (Akino i Sar., 1999).
Nakon povređivanja ili ubijanja kraljice domaćina parazit
Polyergus se trlja telom ubijene kraljice, valja se po supstratu i čak se pokriva njime par minuta i time dobija karakterističan miris kolonije i kraljice domaćina. Kraljice parazita se zato lakše integrišu u kolonije domaćina sa kraljicom, nego u one bez nje. Mlade domaće kraljice ne izazivaju napad, jer još uvek ne poseduju hemijski potpis tipičan za starije kraljice. Ukoliko više kraljica parazita
P. rufescens uđe u koloniju domaćina samo ona koja prva dođe do kraljice, ubije je i primi karakterističan hemijski potpis od nje biće prihvaćena, dok će ostale biti ubijene. Nakon usvajanja u koloniju posle oko 5 dana, kraljice parazita će usvojiti karakterističan hemijski potpis sličan onom domaćinske vrste, što se može videti na rezulatima analize kutikularnih supstanci.
 |
Hromatogrami kutikularnih hidrokarbona radnika Polyergus rufescens odgajanih od strane
dve različite vrste domaćina (Formica gagates i F. rufibarbis). (D’Ettorre i Heinze, 2001) |
Kraljice
Polyergusa iz
Duforove žlezde (koja se nalazi u unutrašnjosti abdomena, a čiji se sekret izbacuje kroz kloakalni otvor), luče supstance koje domaću kraljicu čine neprivlačnom za radnike, koji je onda odbacuju, pa čak i ubijaju, dok na same radnike deluje umirujuće i smanjuje agresivno ponašanje. Tako da,
Polyergus kraljice koriste dve strategije pri upadu u novu koloniju: nedostatak sopstvenog mirisa (hemijska neznačajnost mladih jedinki) i sticanje hemikalija od domaće kraljice.
Druge vrste koriste slične strategije:
Epimyrma kraljice glume smrt kada im se približe domaći radnici i sede danima u bliskom kontaktu sa
Leptothorax kraljicom, sporo je ubijajući davljenjem. Nasuprot tome
Harpagoxenus sublaevis agresivno napada i izbacuje sve adultne radnike i kraljicu domaćina. Koristeći supstance iz sekreta Duforove žlezde koje zbunjuju radnike domaćine i uzrokuju da se međusobno bore.
 |
Diagram mrava radnika, koji prikazuje njegovu unutrašnju strukuturu i položaj Duferove žlezde.
Duferova žlezda proizvodi supstancu koju ostali mravi mogu osetiti i pratiti kao trag.
Pavanova žlezda sadrži otrov dok analna i mandibl žlezda proizvode hemikalijekoje se
koriste kao alarmni signali. |
Vrste
H. sublaevis, P. samurai i P. breviceps dele slične kutikularne supstance sa vrstama domaćina. Kada je u koloniji prisutno više vrsta domaćina onda hidrokarbonski obrazac kutikule predstavlja mešavinu obe vrste domaćina. Na ovaj način se
F. sanguinea kamuflira kada se nađe u gnezdu sa
F. polyctena. Nasuprot tome
P. rufescens aktivno prilagođavaju svoj kutikularni profil menjajući relativnu količinu pojedinih supstanci na svojoj kutikuli kako bi što bliže odgovarala domaćinskoj. Na slici 6 vidimo primer kada
P. rufescens pokazuje različite hidrokarbonske profile kutikule u zavisnosti od domaćina, iako sve jednike potiču iz iste matične kolonije. Paraziti
Protomognathus americanus su zabeleženi kako obeležavaju radnike domaćina hemijskim supstancama koje ih sprečavaju da se vrate u svoju matičnu koloniju, tj. uzrokuju nekompatibilnost sa matičnom kolonijom verovatno u mirisu, što dovodi do odbacivanja od strane radnika i agresije.
Generalno posmatrano, mravi razvijaju specifičan miris tek posle nekoliko sati provedenih u koloniji (hemijska neznačajnost mladih jedniki). Mladi radnici su neagresivni, luče supstance koje indukuju negu i kontakt drugih radnika iste, ali i alovrsta. Dakle, ovaj mehanizam je široko prisutan kod mnogih vrsta mrava i u evoluciji on je predstavljao adaptivnu karakteristiku koja je omogućila lakšu integraciju mladih mrava u njihove kolonije. Ako pretpostavimo da će prvi mravi sa kojima dođu u kontakt nakon izleganja biti bliski srodnici (što u većini slučajeva jeste tako), onda ova karakteristika potpomaže altruizam među srodnicima i samim tim nastavak vrste. Mravi robovlasnici iskorišćavaju ovu adaptivnu karakteristiku i altruističko ponašanje mrava robova koje je evolutivno namenjeno bliskim srodnicima iz njihove kolonije i preusmeravaju ga ka sebi i sopstvenim potomcima.
U prvim satima života tek izleglog mrava dešava se imprintovanje mirisa starijih radnika u koloniji, bilo da su oni pripadnici njegove ili druge vrste. Ovo imprintovanje mirisa kolonije i njenih članova, dovodi i do toga da kod nekih vrsta robovlasnika, ako se jedna vrsta robova nađe u njemu ni jedna druga vrsta više neće biti prepoznata kao potencijalni plen pri racijama. Postoje i slučajevi kada se u koloniji može naći više vrsta domaćina, a imamo i primer kod
Leptothorax acervorum i
L. muscorum kada drugi prihvataju larve prvih, ali ne i obrnuto.
Evoluciono poreklo robovlasništva na primerima iz plemena Formicoxenini
Pojava robovlasništva prvi put je opisana još pre 200 godina (Huber,1810), i od tada je počela svojom specifičnošću da fascinira naučnike i zaljubljenike u prirodu. Mnogi su istraživali evoluciono poreklo i značaj ovakvog vida ponašanja i odnosa. Čak je i Čarls Darvin u svojoj knjizi O poreklu vrsta (1859) nekoliko strana posvetio složenom ponašanju mrava robovlasnika za vreme napada na gnezda robova.
Dulosis se pojavio nezavisno u bar 9 navrata, u dve od 21 subfamilije mrava (Buschinger, 1986; Hölldobler i Wilson, 1990; Stuart, 2002).
Pleme
Formicoxenini predstavlja hotspot u evoluciji robovlasništva, jer se u ovom malom plemenu koje čini samo 4% od ukupnog broja vrsta mrava nalazi čak 60% svih nezavisnih linija nastanka robovlasništva. Takođe i veliki broj vrsta inkvilina pripada ovom plemenu. Postavlja se pitanje zašto baš ovo pleme ima ovoliku zastupljenost socijalno parazitskih tipova ponašanja i koje njegove osobine su dovele do toga? O tome ćemo više reći nakon što bacimo svetlo na filogenetsku sliku robovlasnika i robova ovog plemena i evoluciju ovih odnosa.
 |
Pleme Formicoxenini pripada podfamiliji Myrmicinae, najvećoj podfamiliji koja
broji 140 rodova u koje spada preko 6700 vrsta mrava i 800 podvrsta. |
Različite linije robovlasnika u plemenu
Formicoxenini pokazuju različite nivoe bogatstva vrstama. U liniji
Myrmecoxenus javlja se 8 ili više morfološki sličnih vrsta, što ukazuje na adaptivnu radijaciju u ovom rodu. U drugoj monofiletskoj liniji imamo samo jednu vrstu
Protomognathus americanus. Ovo ukazuje na hipotezu da starije linije sa dužim vremenom nezavisne evolucije (kao što je
Myrmecoxenus) imaju i više vrsta.
Istraživanje sprovedeno 2005. godine na uzorcima iz Evrope i Severne Amerike (
Beibl i Sar., 2005) pokazalo je da postoji 6 monofiletskih konvergentnih linija sa pojavom robovlasništva u plemenu
Formicoxenini. U istraživanje je uključena i vrsta inkvilina
Temnothorax minutissimus koja je takođe jedna odvojena linija. Tih šest monofiletskih linija su robovlasničke vrste iz roda
Chalepoxenus,
Harpacoxenus,
Myrmecoxenus, vrsta
P. americanus, T. duloticus i dosad formalno neopisana vrsta roda
Temnothorax.
Parsimonijskim i Bayes-ijanovim analizama mitohondrijalne DNK (gena za citohrom-oksidazu I i II) vrsta parazita i njihovih domaćina u istim kolonijama uočene је srodnost vrsta parazita i njihovih domaćina. Vrste robovlasnika iz roda
Harpacoxenus (
H. sublaevis i
H. canadensis) pokazuju monofiliju sa vrstama domaćinima Leptothorax acervorum i L. canadensis. Neoarktički paraziti roda
Temnothorax i njihovi domaćini čine monofiletsku granu.
Temnothorax duloticus blizak je vrsti na kojoj parazitira
T. curvispinosus i vrsti inkvilina
T. minutissimus. Nova vrsta iz roda
Temnothorax je jako bliska
T. longispinosus koja joj je domaćin. Svi ovi nalazi potvrđuju u velikom delu Emery-jevo pravilo (1909) koje navodi da je socijalni parazit, vrsta blisko srodna domaćinu, s tim da su obe vrste evoluirale od zajedničkog pretka. Uže tumačenje ovog pravila je da su parazitska i domaćinska vrsta sestrinske. Šire tumačenje je da su vrste domaćini pripadnici neparazitske klade koja je najbliža parazitu i da paraziti mogu proći kroz adaptivnu radijaciju pri kojoj će parazitirati i na manje bliskim vrstama domaćina (Buschinger, 1990). Mnogi naučnici su pristalice stava o sličnosti i zajedničkom poreklu vrste domaćina i parazita (Buschinger, 1990; Heinze, 1991,1995; Baur i sar, 1995).
 |
Paraziti i njihovi domaćini su često i bliski rodjaci. Na primer, mravi
Formica fusca, su najčešće porobljeni od strane mrava
koji su njihovi veoma bliski rodjaci. |
Značajan izuzetak od ovog pravila predstavlja socijalni parazitizam koji se dešava između vrsta iz različitih podfamilija (Mashwitz et al. 2000). U ovom slučaju paraziti moraju prevazići razlike u komunikacionim sistemima i feromonima između sebe i domaćinske vrste, što je veliki izazov u vrstama koje nisu blisko srodne. Sada se možemo vratiti na razmatranje tako učestalog pojavljivanja robovlasništva u plemenu
Formicoxenini. Postoje tri pretpostavke o uzrocima nastanka robovlasništva:
predatorstvo,
teritorijalnost, polidomija i poliginija. Teorija o predaciji (Darwin, 1859) kaže da je robovlasništvo nastalo tako što su mravi pre-paraziti napadali druge kolonije i otimali larve i lutke radi ishrane. Neka od tih jaja, larvi i lutaka su nakon donošenja u matično gnezdo, nekim slučajem ostala nepojedena i nakon izleganja su počeli da obavljaju funkciju radnika. Ova teorija je malo verovatna, jer su pripadnici plemena
Formicoxenini generalisti u ishrani i ne hrane se drugim vrstama mrava.
Teorija o teritorijalnosti
Teorija o teritorijalnosti (
Stuart i Alloway, 1982,1983) kaže da je robovlasništvo evoluiralo iz teritorijalnih borbi između susednih gnezda (konspecifičkih ili ne), pri kojima je oteti podmladak iz kolonije nošen u matična gnezda i tu je služio kao radna snaga. Viđano je da velike kolonije vrše invaziju na okolne kolonije iste vrste, i time otimaju njihovo potomstvo (Hölldobler, 1976; Pollock i Rissing, 1989). Takođe, uočene su i kolonije u kojima su povremeno (dakle, ne kao pravilo), kao radnici primećene jedinke drugih vrsta, što ukazuje da se i interspecifički napadi takođe dešavaju (Kutter, 1957; Alloway, 1980). Treba naglasiti da se kada navodimo ove podatke misli na vrste koje nisu robovlasničke i da im se ovakav vid ponašanja samo sporadično javlja. U laboratorijskim uslovima uočeno je da kolonije neparazitske
Leptothorax sp. i
Temnothorax sp. vrše napade na okolne kolonije iste vrste na vrlo organizovan način i da ovakvi intraspecifički napadi mogu biti polazna tačka za evoluciju robovlasništva (Wilson, 1975; Alloway, 1980; Stuart i Alloway, 1982, 1983; Pollock i Rissing, 1989). Međutim, teorijska razmatranja i terenska posmatranja pokazuju da mravi sa malim kolonijama kakav je i
Leptothorax i generalno gledano pripadnici plemena
Formicoxenini retko brane teritoriju, već uglavnom nežno uklanjaju uljeze samo iz vrlo bliske okoline gnezda, ne sprovode žestoke, organizovane teritorijalne bitke.
Teorija o polidomiji i poliginiji
Teorija o polidomiji i poliginiji kao uzroku nastanka robovlasništva (Wasmann,1909;
Buschinger, 1970,1990; Elmes, 1973, 1978;
Bourke i Franks, 1991) kaže da poreklo zasnivanja paraziske kolonije možemo naći u povratku oplođenih mladih kraljica u matičnu koloniju, a napadi sa otimanjem podmladka su mogle evoluirati od transporta mladih između različitih kolonija jednog polidomnog društva. Međutim, problem u ovom tumačenju je što u ovom vidu transporta ne može se nađe način za evoluciju agresivnih napada, izviđanja i borbe. Polidomija i poliginija su česte u
Formicoxenini plemenu kao i u plemenu
Formicini, koje je hotspot robovlaništva u drugoj podfamiliji mrava u kojoj se javlja socijalni parazitizam, što ide u prilog ovoj teoriji. Spajanjem dve poslednje teorije, o teritorijalnosti i polidomiji i poliginiji Alloway (1980) i Alloway i Stuart (1983) predlažu da je robovlasništvo nastalo od pljačkanja podmladka i teritorijalnih bitki kod poliginih, polidomih vrsta kod kojih su nove kolonije osnivane re-usvajenjem mladih kraljica i fisijom kolonije, pre nego solitarnim osnivanjem.
Pitanje porekla robovlasništva, a i svih ostalih tipova socijalnog parazitizma ostaju otvorena. Podaci iz mnogih grupa socijalnih parazita još uvek nedostaju i tek nakon njihovog pribavljanja mogla bi se dobiti potpunija slika o evoluciji ovih vidova ponašanja. Jasno je da se nijedan tip socijalnog parazitizma ne može izučavati odvojeno od ostalih, jer jedni verovatno predstavljaju izvor za nastanak drugih i često su granice između njih nejasne. Nova istraživanja su usmerena izučavanju mehanizama komunikacije između domaćina i parazita, reproduktivnih konflikata i odnosa raspodele polova, evoluciono-genetičkim ispitivanjima. Posebno se puno očekuje od rezultata istraživanja dosad neobrađivanih grupa, koje možda u sebi kriju nedostajuće karike u evoluciji socijalnog parazitizma, kao što su na primer brojni parazitski rodovi iz plemena
Formicoxenini koji su vrlo značajni sa aspekta istraživanja socijalnog parazitizma generalno i odnosa između porekla robovlasništva i inkvilizma (D’Ettorre i Heinze, 2001).
Autor, Čučak Dragana, Prirodno-matematički fakultet, Departman za biologiju i ekologiju,
Univerzitet Novi Sad
Reference
Agosti, D., and N. F. Johnson. Editors. 2005. Antbase. World Wide
Web electronic publication. antbase.org, version (05/2005). (Internet, dostupno na http://antbase.org/, datum prristupa stranici 1.
februar 2011.)
AntWeb 2002-2011. (internet, dostupno na http://www.antweb.org/index.jsp,
osnovan od The California Academy of Sciences, datum pristupa stranici 9. januar
2011.)
Emery, C. Über den Ursprung der dulotischen, parasitischen und
myrmekophilen Ameisen. Biologisches Centralblatt 29, 352-362
(1909).
Mori, A. i Le Moli, F. 1998.Mating Behavior and
Colony Founding of the Slave-Making Ant Formica sanguinea (Hymenoptera:
Formicidae). Journal of Insect Behavior, 11(2): 235-245. C http://www.springerlink.com/content/pl828gqk23125r25/
, datum pristupa stranici 1.
februar 2011.)
Wilson, 1984. Tropical social
parasites in the ant genus Pheidole, with an analysis of the anatomical
parasitic syndrome (Hymenoptera: Formicidae). Insectes Sociaux.31(3)3:
316-334. (Internet, dostupno na http://www.springerlink.com/content/3406141p38208676/ , datum
pristupa stranici 1. februar 2011.)