Knjiga: Uvod u izgradnju mozga i nervnog sistema

Razvoj mozga od njegovog potpunog početka na embrionalnom nivou do izuzetno složene i potpuno funkcionalne strukture kakvu ima mozak odrasle osobe je zaista izuzetan proces. Razumevanje tog procesa i dalje ostaje težak izazov, uprkos velikom broju naučnih dostignuća tokom poslednjeg veka. Mozak je najsloženiji živi organ na Zemlji i imaju ga mnoge grupe životinja. Oni koji žele da razumeju svoje mesto u biološkom poretku naše planete bi svakako trebali da se bolje upoznaju sa ovim organom. Ukoliko vam engleski ne pravi problem, ova knjiga pruža veoma zanimljiv i slikovit uvod u funkcionisanje moždanih ćelija koje su gradivni blokovi mozga svih životinja. Izdanje je poprilično sveže, 2011. godina.

Ukratko, ova knjiga pruža pre svega vizuelan i opširan uvod od rane faze kada odredjene ćelije embriona postaju neuroni, kako se kontroliše njihova proliferacija, šta reguliše vrste nervnih ćelija koje će od njih nastati, kako se dalje neuroni medjusobno povezuju, kako se ove veze kasnije unapredjuju pod uticajem nervnih aktivnosti, uključujući i one koje proističu iz iskustva. I konačno, zašto je za neke neurone sasvim normalno da umru tokom tog procesa. Razvoj svake od komponenti nervnog sistema čoveka uporedjuje se i obradjuje poredeći ga sa nervnim sistemima vinske mušice, crva, žabe, pileta, miša, mačke i naravno majmuna.


Preuzmi knjigu,  350 strana, 140 MB


Ekipa autora koja ima ogromno iskustvo u predavanju ove oblasti studentima (Prof. David J. Price,  Dr. John Mason, Andrew P. Jarman i Peter Kind) se potrudila da knjiga ne zahteva visok nivo biološkog znanja, i da bude razumljiva i onim ljudima koji nisu studenti medicine i koji nemaju stručnijeg znanja iz oblasti neuronauka ili molekularne genetike. Cilj pisanja ovakve knjige bio je da se obezbedi pristupačan, ali i rigorozan uvod u mehanizame nervnog razvoja za buduće potencijalne studente i one koji sa malo ili gotovo ni malo prethodnog znanja tek ulaze u ovu oblast. Treći razlog za pisanje ove knjige, kako autori tvrde, bio je da pruži upečatljive i slikovite ilustracije razvojnih mehanizama i eksperimenata koji su doveli do njihovog otkrića. Knjiga nema klasičan pristup već povremeno koristi i šaljive analogije kako bi pojmove i koncepte učinila još razumljivijim (pogledati i kritike knjige koje je dao labtimes.org). Izdavač je takodje omogućio i web prezentaciju gde se kompletan materijal može preuzeti besplatno.

Razvoj nervnog sistema je veoma vizuelna grana biologije: eksperimenti se često izvode i na onim strukturama koje su vidljive ljudskom oku bez nekakvog tehničkog problema. Medjutim, pravi problem u savladavanju oblasti kao što je razvoj nervnog sistema, kako ističe jedan od bivših studenata, jeste potreba da se razume odredjeni stepen genetike, molekularne biologije, biohemije i fiziologije, da bi ste bili u stanju da spojite te osnove i da ih koristite kao četiri dimenzije. Iz tog razloga, autori su u prvim poglavljima pokušali da se pozabave i tim zadatkom.

Veće znanje o tome kako se nervni sistem gradi će doneti i velike koristi po ljudsko zdravlje i buduće tehnologije. Razotkrivanje mehanizama koji dovode do razvoja zdravog mozga pomaže i savremenoj medicini u lečenju teških bolesti nervnog sistema, kao što su autizam, epilepsija, razni oblici šizofrenije, itd.

Biografije autora:
Prof. David Price
Dr. John Mason

Socijalni parazitizam i robovlasništvo kod mrava

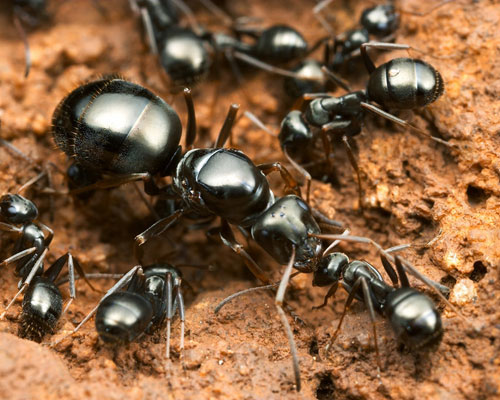
Mravi su insekti iz reda Hymenoptera. Zajedno sa pčelama i osama spadaju u podred Aculeata. Do danas je poznato preko 14000 vrsta mrava, a od tog broja zvanično je opisano i imenovano preko 12500. Najveći deo vrsta živi u tropskim delovima Južne Amerike gde su doživeli izuzetnu diverzifikaciju. Mravi spadaju u familiju Formicidae (za filogenetsko stablo pogledati pdf), socijalni su insekti i grade složena društva veličine od nekoliko stotina do nekoliko desetina hiljada, pa i stotina hiljada jedinki. Veličina im se kreće od 1 do čak 20 mm. Telo im se sastoji od glave, grudi (engl. thorax) i trbuha (engl. abdomen).

Procene su da u svakom momentu na svetu postoji 1 kvadrilion (1015) (Embery, 1983) jedinki mrava i da kada bi na jedan tas stavili sve ljude, a na drugi sve mrave na planeti tasovi bi bili u ravnoteži. Iz toga vidimo da, i pored njihove male veličine, mravi sačinjavaju veliki deo biomase i značajno utiču na funkcionisanje ekosistema. U njihovim društvima razlikuju se tri osnovne kaste, mada se javljaju i mnoge varijacije. Kao i kod ostalih opnokrilaca nasleđivanje pola je po haplodiploidnom sistemu, po kome su ženke diploidne i nastaju iz oplođenih jaja, a mužjaci su haploidni i nastaju iz neoplođenih jaja. Kastu radnika čine sterilne diploidne ženke. Mnoge vrste mrava imaju polimorfnu kastu radnika, te su neki veći, neki manji i sa različitim oblikom vilica i drugim morfološkim osobinama. Neki su specijalizovani za skupljanje hrane, drugi za negovanje mladih i kraljice, treći za odbranu kolonije. Postoje čak i takvi radnici čija je jedina funkcija da u svom abdomenu koji ima sposobnost izuzetnog proširivanja čuvaju rezerve hrane, tj. slatki biljni sok koji radnici skupe na svojim pohodima.

Uobičajeni životni ciklus mrava

Jedina plodna jedinka u koloniji je kraljica. Kraljice i mužjaci se morfološki jasno razlikuju od radnika, pre svega po prisustvu krila (mada postoje i vrste sa beskrilnim polnim jedninkama). Takođe, polne jedinke su veće, sa krupnijim grudima. Mužjaci imaju nesrazmerno manju glavu u odnosu na grudi koje su uvećane. Imaju jedan tergit više na trbuhu, manje-više isturene genitalije i antene su sa jednim segmentom više u funikulusu. Naravno, postoje i izuzeci kod nekih vrsta koje imaju beskrilne polne jedinke ili se one manje razlikuju od radnika. Neke vrste mrava imaju samo jednu kraljicu u koloniji (monoginija), dok druge mogu imati po više desetina, pa i stotinu kraljica u zavisnosti od ukupne veličine kolonije (poliginija). Polidomija je pojava kada se kolonija mrava sastoji iz više odvojenih gnezda, koja su sva poreklom nastala od jednog. Neke vrste formiraju takozvane superkolonije, koje su sačinjene od mnogo pojedinačnih kolonija, koje nastaju fisijom (deljenjem) drugih kolonija, kada kraljica sa delom radnika napušta matičnu koloniju i zasniva novu na pogodnom mestu. Nasuprot tome imamo monodomiju kada kolonija ima samo jedno gnezdo.

Kraljica nakon prelaska u adultni stadijum i nakon kratkog perioda koji provede u matičnoj koloniji, izleće na svadbeni let, nalazi mužjaka i pari se s njim. Nakon parenja mužjaci vrlo brzo uginu, a kraljice na pogodnom mestu koje pronadju osnivaju novu koloniju. Nakon parenja kraljica odgriza sopstvena krila, jede ih radi pribavljanja energije, jer se neće hraniti dok god ne izvede prvu generaciju radnika iz jaja koja izleže u novoosnovanoj koloniji. Takođe, energiju dobija i iz sada nepotrebnih krilnih mišića i dela jaja koje pojede nakon izleganja. Nakon izleganja radnici će početi da nabavljaju hranu i grade koloniju.

Pojam socijalnog parazitizma

Pre svega, potrebno je definisati pojam socijalnog parazitizma. Po definiciji koju su dali Hölldobler i E.O.Wilson (1990) socijalni parazitizam je koegzistencija dve vrste socijalnih insekata u istom gnezdu, od kojih je jedna parazitski zavisna od druge. Ova zavisnost se ogleda u skloništu koju dobija u gnezdu domaćina, ishrani, nezi potomaka, održavanju gnezda, nabavljanju hrane i druge poslove koje vrše mravi domaćini u ovom parazitskom odnosu. Neki autori u ovaj tip odnosa svrstavaju intraspecijski parazitizam, autoparazitizam, parazitizam solitarnih vrsta životinja na socijalnim, ali ove pojave se ne mogu svrstati u socijalni parazitizam, jer on podrazumeva kompleksan odnos između dve različite vrste socijalnih insekata (mrava) koje stupaju u složenu interakciju.

Parazitska vrsta mrava Protomognathus americanus  nakon napada i ubijanja odraslih jedinki kolonije Temnothorax longispinosus  odnesi njhove potomke u svoj mravinjak gde će ih kasnije prisiljavati da vode brigu o njihovim larvama.


Neki autori zastupaju pojam intraspecifičkog parazitizma, ali ova pojava se ne može svrstati u socijalni parazitizam, jer se napadi sa otimanjem mladih iz konspecifičkih kolonija javljaju sporadično kod mnogih vrsta i ne uključuju interakciju između dve socijalne vrste kakvu imamo kod socijalnog parazitizma u pravom smislu. Ni autoparazitizam koji je definisao Bolton (1986), pojava kada mlada kraljica nakon parenja odlazi u konspecifičku koloniju, gde eventualno biva prihvaćena, negovana od strane radnika i kasnije fisijom stvara nove kolonije, ne spada u socijalni parazitizam. Ovde se u slučaju polidomnih kolonija radi o recipročnom (a ne parazitskom) odnosu, jer kolonija koja u jednom slučaju ima ulogu „domaćina“ u drugom će sama davati kraljice koje na drugim kolonijama „parazitiraju“. Sustanari u gnezdu mrava kao što su vaši, nematode, bube i drugi takođe se ne mogu smatrati socijalnim parazitima, jer ovo ne podrazumeva odnos između dve različite socijalne vrste koje stupaju u složene interakcije. U ovom radu će detaljnije biti obrađen samo trajni parazitizam sa robovlasništvom - dulosis.

Učestalost i sistematska distribucija parazitskih vrsta mrava

Među dosad opisanih 12679 vrsta mrava (Agosti i Johnson, 2009) uz još 1500 koje čekaju formalni opis i imenovanje, njih 230 su parazitske. Većina su retke i teško se zapažaju, pa je zbog toga njihov broj verovatno veći i mnoge će tek biti otkrivene. Distribucija po subfamilijama je vrlo neujednačena i većina vrsta su iz Formicinae (9 od 25 rodova) i Myrmecinae (33 od 139 rodova). Neki rodovi su čisto parazitski: Aenergates, Bothriomyrmex, Chalepoxenus, Formicoxenus, Harpagoxenus, Myrmoxenus, Polyergus, Protomognathus, Strongylognathus, Teleutomyrmex (Buschinger, 2009). Nejasno je zašto su neke vrlo brojne subfamilije potpuno bez parazitskih vrsta, a na primer rod Camponotus sa 1500 vrsta ima samo jednu parazitsku-inkvilinsku vrstu C. universitatis (Tinaut i sar., 1992).

Sva četiri osnovna tipa socijalnog parazitizma se javljaju u subfamilijama Formicinae i Myrmicinae, u Pseudomyrmicinae i Dolichoderinae (Botriomyrmex) se javlja privremeni tip, a u Myrmeciinae inkvilizam (Buschinger, 1986). Socijalni parasitizam je očigledno ređi u tropima nego u umerenim zonama iz još neutvrđenih razloga. Jedan od primera socijalnog parazitizma u tropima je vrsta Megalomyrmex symmetochus koja je parazit u gnezdima vrste mrava krojača iz roda Trachymyrmex i hrani se mladima i gljivama koje mravi domaćini uzgajaju.


Parazitski mrav Megalomyrmex symmetochus (manji) sa svojim domaćinima
iz roda Trachymyrmex u gnezdu (bašti gljiva) domaćina.

Socijalni parazitizam se može javiti u više tipova. Postoje 4 osnovna vida socijalnog parazitizma kod mrava: privremeni socijalni parazitizam (ksenobioza), trajni sa robovlasništvom (dulosis) i trajni bez robovlasništva (inkvilizam). Pregled socijalnog parazitizma dat je po Buschinger-u (2009):

Ksenobioza

Ksenobioza je vid socijalnog parazitizma kada je mrav "gost" obligatno vezan za domaćina. Odnos se sastoji u tome da paraziti žive u koloniji domaćina, koristeći ga za pružanje skloništa i ishranu. Mravi paraziti sami brinu o svom potomstvu i u tom smislu ne zavise od domaćina, za razliku od ostalih tipova socijalnog parazitizma. Domaćin i parazit uglavnom nisu blisko srodne vrste i dešava se da su čak iz različitih subfamilija. Ksenobioza je mogući prekursor inkvilizma, o kome će biti reči dalje u tekstu. Zabeležena je u tri roda Formicoxenus, Polyrachis i Megalomyrmex. Formicoxenus pravi male kolonije od po oko stotinak individua u gnezdima krupnijih vrsta sa dosta većim kolonijama (Formica, Myrmica, Manica), drži se odvojeno od glavnine domaćina, zauzimajući skrajnute galerije. Zavise od domaćina za sklonište i hranu (uzimajući je direktno od radnika domaćina koji ih hrani ili učestvujući u razmeni između dva radnika - trophilaxis).

Privremeni parazitizam

Privremeni parazitizam je kako mu i ime kaže prolaznog karaktera, ovakav vid interakcije između dve vrste se javlja samo u vreme zasnivanja nove kolonije, tj. dok se mrav parazit nalazi u fazi osnivanja kolonije. Kraljica parazitske vrste nakon svadbenog leta ulazi u koloniju pogodne vrste domaćina, ubija ili izbacuje kraljicu i leže jaja koja neguju radnici domaćini. Vremenom broj radnika parazita raste, a broj domaćina se usled starenja i umiranja smanjuje (jer nema kraljice koja bi izlegla jaja i nove radnike), ostavljajući na kraju samoodrživu koloniju parazita.

Robovlasnička jedinka (Lasius claviger) uspostavlja novu koloniju tako što se probija unutar kolonije
domaćina i ubija njegovu kraljicu. Fotografija Alex Wild (www.alexanderwild.com).

Kraljice vrste Lasius umbratus pre ulaska u koloniju domaćina na ulazu sačekaju radnika koga ubijaju i sažvaću, primajući time miris kolonije i postajući atraktivnije radnicima od domaće kraljice koja ili vremenom umire od gladi ili biva izbačena iz kolonije. Srodna vrsta L. alienus napada znatno veću domaću kraljicu i davi je do smrti (Faber, 1967). Kraljice Bothriomyrmex sp. tokom preuzimanja kolonije odsecaju glavu domaće kraljice. Postoje i slučajevi superparazitizma, npr. kada kraljica L. fuliginosus zasniva koloniju u gnezdu L. umbratus koja je takođe privremeni parazit vrste L. niger i sličnih (Seifert, 2007). Ponekad više kraljica odjednom invadira koloniju domaćina. Članovi Formica rufa grupe su vrlo moguće svi privremeni paraziti ili na članovima podroda Serviformica ili na konspecifičkim gnezdima, kada kasnije pupljenjem formiraju superkolonije.

Trajni parazitizam sa robovlasništvom (dulosis)

Robovlasništvo je tip socijalnog parazitizma kod mrava kod koga parazit trajno zavisi od već ustanovljenih kolonija srodnih vrsta mrava za sve zadatke koji se obavljaju u koloniji (Buschinger, 1986; Hölldobler i Wilson, 1990; Stuart, 2002).U ovom tipu domaćini se nalaze u mešovitom gnezdu zajedno sa parazitima tokom celog trajanja kolonije, ne samo pri osnivanju. Nastao je u minimum 9 odvojenih linija, u dve subfamilije mrava Formicinae i Myrmicinae, sa najvećom koncentracijom vrsta u dva tribusa: Formicini, odnosno Formicoxenini (D’Ettorre i Heinze, 2001).

Kolonije robovlasnika se obično osnivaju u leto od strane mlade oplođene kraljice koja nakon svadbenog leta ulazi u koloniju domaćina. Početak osnivanja parazitske kolonije može teći tako što mlada oplođena kraljica ulazi u koloniju pogodne vrste mrava robova, nalazi kraljicu (ili kraljice ukoliko je u pitanju poligina kolonija) i ubija je ili izbacuje iz kolonije i preuzima kontrolu nad radnicima mehanizmima o kojima će biti više rečeno dalje u tekstu. U nekim rodovima kraljica će sem kraljice izbaciti iz kolonije i sve odrasle radnike. Kod nekih vrsta kraljica će pre ulaska u koloniju prvo neko vreme provesti ispred ulaza i nakon kontakta i sukoba sa radnicima iz kolonije domaćina poprimiće miris kolonije, što će joj olakšati ulazak u koloniju i smanjiti agresiju radnika domaćinske vrste.

Radnici robovlasničke kolonije Formica subintegra se vraćaju u svoj mravinjak
noseći otete pupe budućih mrava robova

Neke kraljice imaju sposobnost lučenja specifičnih supstanci iz Duforovih žlezda koji imaju efekat smanjenja nivoa agresivnosti radnika domaćina i time olašavaju infiltraciju. Kraljica počinje da leže jaja o kojima brinu radnici domaćini, neguju ih i hrane, i vremenom počinje izleganje novih mrava robovlasnika. Radnici  domaćina će se nakon izleganja iz jaja i larvi (oniih koji su preostali nakon upada nove kraljice), brinuti o novoj kraljici i njenom potomstvu. Vremenom radnici robovi umiru, a pošto više ne postoji kraljica domaćinske vrste koja bi leganjem novih jaja obnavljala brojnost radnika, onda je potrebno radnu snagu nadomestiti na neki drugi način. Zato mravi robovlasnici napadaju kolonije vrsta koje su pogodne kao robovi, otimaju jaja i larve i nose ih nazad u svoje gnezdo. U njemu jaja i larve različitim mehanizmima postaju potpuno integrisane u mravlje društvo robovlasničke vrste. Nakon izleganja oni će obavljati poslove negovanja mladih, donošenja hrane, odbrane gnezda, brige o kraljici, ishrani robovlasnika,itd. Ponekad će čak učestvovati i u novim napadima na druge kolonije bilo sopstvene ili neke druge vrste mrava robova.


Ima li otpora unutar kolonije robova prema robovlasnicima ?

Kada parazitska vrsta mrava Protomognathus americanusa izabere i napadne koloniju Temnothorax longispinosus , ona pobije sve odrasle jedinke u njoj a zatim ukrade i odnese njihove potomke u svoj mravinjak gde ih prisiljava da hrane i vode brigu o njihovim larvama. Na ovaj način mravi robovi vode brigu o larvama svog sopstvenog okupatora.

Medjutim, novije istraživanje  (cela studija) pokazuje da porobljeni Temnothorax longispinosus radnici, povremeno prave "pobune" u kojima ubijaju larve svojih okupatora, to jest, larve Protomognathus americanus. Na ovaj način, kontrolišući rast njihove populacije mravi robovi održavaju broj svojih okupatora, smanjuju i broj pobuna i time utiču na povećanje fitnesa obe vrste. Ostala slična istraživanja govore da je ovo ponašanje prisutno i kod ostalih kolonija insekata sa oblicima socijalnog parazitizma i robovlasništvom.

Ono što je posebno zanimljivo, Protomognathus americanusa ne napada svaku koloniju na koju naidje. Oni imaju specijalne izvidjače koji pažljlivo biraju kolonije Temnothorax mrava koje treba napasti. Pri tom izboru, ne biraju slabo branjene, već suprotno - kolonije koje su najbolje branjene.
Naučnici koji su pokušali da istraže ovo ponašenje došli su do toga da su Protomognathus americanus vodjeni potrebom da im budući robovi budu što jači i otporniji kako bi bolje brinuli o njihovim larvama.


U nekim rodovima svi radnici domaćina bivaju ubijeni nakon upada (Chalepoxenus, Harpagoxenus). Radnici robovlasnici su obično nesposobni da samostalno obavljaju zadatke u gnezdu, ali su mnogi od njih razvili različite adaptacije koje ih čine izuzetnim borcima. Polyergus (Formicinae) i Strongylognathus (Myrmicinae) imaju specijalne mandibule koje lako probijaju oklope napadnutih mrava. Harpagoxenus sublaevis imaju bezzube mandibule kojima lako odsecaju ekstremitete. Neke vrste imaju snažne žaoke (Chalepoxenus, Myrmicinae) ili agresivne sekrete ili supstance (Raptiformica) koje služe kao sredstva smanjivanja agresije napadnutih mrava ili kao sredstva zbunjivanja.

Obligatno i fakultativno robovlasništvo

Fakultativno robovlasništvo se javlja na primer kod vrste Formica subnuda i F. sanguinea i kod njega vrsta robovlasnik može opstati i samostalno ako treba. Robovi (ako su prisutni) čine samo 10% ukupnog broja radnika u koloniji. Nisu svu robovlasnici podjednako uspešni u porobljavanju. Tako na primer F. subnuda uspeva da pokori samo male, mlade kolonije domaćina. Oni se suočavaju sa velikim otporom domaćina, pa napadi traju satima i smrtnost je velika kako među domaćinima tako i napadačima.

Obligatni robovlasnik Polyergus breviceps (mravi crvene boje) se jasno razlikuju od
svojeg domaćina Formica argentea (mravi crne boje).

Obligatno robovlasništvo se javlja, pored ostalih, i kod vrste Polyergus rufescens. Kod obligatnog tipa robovlasništva vrsta robovlasnik ne može opstati bez robova, pošto su radnici izgubili sposobnost da sami obavljaju poslove pribavljanja hrane, odgoja mladih i sl. Robovi čine preko 90% ukupnog broja radnika u koloniji. Oni mogu uspešno napadati i velike kolonije i ostvariti veći broj robova. Njihova efikasnost povećana je specifičnim adaptacijama kao što su uvećane žlezde sa specifičnim sekretima različitih funkcija i srpaste mandibule. Žlezdani sekreti koji se luče tokom napada smiruju radnike napadnute kolonije ili ih okreću jedne protiv drugih, čime se smanjuje agresija prema napadačima. Radnici koji pruže otpor brzo se imobilišu brzim bušenjem glave ili tela mandibulama. Ovako adaptirane mandibule sjajne su za borbu, ali čine mrave robovlasnike nesposobnim za svakodnevne poslove radnika, pa su za opstanak kolonije neophodni robovi. Zrele kolonije zato moraju da se snabdeju sa minimum 6000 robova svake sezone, kako bi obezbedili dovoljno radne snage (Savolainen & Deslippe 1996).

Faklultativno robovlasništvo predstavlja važnu temu u izučavanju socijalnog parazitizma, jer je ono karika između slobodno-živećih vrsta i obligatnih parazita. F. sanguinea je iz tog razloga zanimljiva jer predstavlja nešto između trajnog i privremenog parazitizma, njene kolonije se često mogu naći i bez prisustva robova, a plen jaja, larvi i lutaka iz pohoda često biva pojeden, a ne ostavljen da se iz njih izlegu radnici robovi.

Trajni parazitizam bez robovlasništva (inkvilizam)

U ovom tipu odnosa parazitske kraljice ulaze u gnezda domaćina, nalaze pogodno mesto (uglavnom skriveno unutar gnezda) i tu započinju stvaranje svoje kolonije. Parazitska vrsta uglavnom nema radnike, već kraljica ulaže samo u proizvodnju seksualnih jedninki. Njihova strategija se sastoji u izleganju što većeg broja polnih jedinki, a manje radnika. Radnici domaćina neguju kako jaja sopstvene vrste tako i jaja parazita. Smatra se da je prekursor za nastanak inkvilizma bila ksenobioza. Naime, kod nje imamo mrave parazite u gnezdu domaćina koji proizvode radnike i o njihovim jajima brinu domaćini. Domaćini obezbeđuju i negu i hranu podmlatku, tako da se može izvesti zaključak da je vremenom došlo do nestanka (nepotrebne) radničke kaste i specijalizacije za stvaranje isključivo polnih jedinki.

Može se napraviti podela na kraljica-tolerantne i kraljica-netolerantne inkviline. Kraljica-netolerantni inkvilini ili ulaze samo u kolonije bez kraljice (Anergates atratulus) ili ubijaju kraljicu po ulasku (Leptothorax gosewaldi i neke vrste rodova Myrmecoxenus i Chalepoxenus koje su po nekim autorima ustvari degenerativni robovlasnici). Većina vrsta spada u kraljica-tolerantne inkviline koji ne ubijaju kraljicu domaćinske vrste, već žive u koloniji bez većih sukoba sa domaćinima.

Podela se može sprovesti i po nivou anatomskih promena: Anergates atratulus i Teleutomyrmex sp. su pretrpele znatnu specijalizaciju i anatomske izmene (duga evolucija) i predstavnici su onoga što je Wilson (1984) opisao kao anatomski parazitski sindrom. Druge kao što su Plagiolepis sp. i još neki, su manje izmenjene. Samo su manje u veličini i imaju izraženiji polimorfizam među kraljicama i mužjacima. Mnoge se teško razlikuju od domaćina (npr. Leptothorax sp. od domaćina L. acervorum). Ponekad se mogu i dve vrste parazita naći u istoj koloniji domaćina. Inkvilizam je najčešći oblik socijalnog parazitizma. 2005.god. je otkrivena i prva vrsta socijalni parazit iz poneroidnog kompleksa podfamilija, gde dosad nije zabeležen nijedan vid socijalnog parazitizma (Ectatoma parasiticum).

Ekstremni slučaj ovog tipa parazitizma se javlja kod takozvanog ultimativnog parazita - švajcarskog mrava Teleutomyrmex schneideri koji ima izuzezno konkavan abdomen i duge tarzalne kandže što mu omogućava da ceo svoj život provede zakačen za leđa ili ventralnu stranu toraksa kraljice domaćina, slično ektoparazitu (Kutter, 1968).

Neke vrste socijalnih parazita zastupljene u Srbiji

Kao što smo već naveli od oko 12500 vrsta mrava samo mali broj učestvuje u socijalnom parazitizmu, bilo kao paraziti bilo kao domaćini. U celom svetu se javlja oko 70 vrsta mrava robovlasnika u oko 10 rodova iz dve podfamilije. Među tim vrstama u Srbiji su dosad zabeležene oko 5 vrsta, a to su najčešće : Formica sanguinea i Polyergus rufescens. Ove vrste su fakultativni, odnosno obligatni robovlasnici, a kao robovi služe im različite vrste prvenstveno iz podroda Serviformica.

Formica sanguinea

Mravi sanguinea grupe (istorijski nazvani "Raptiformica") su socijalni paraziti. Oni periodično i organizovano napadaju kolonije drugih Formica vrsta radi otimanja mladih, koji nakon sazrevanja služe kao radnici. Različite su zavisnosti od robova, neki su fakultativni, a neki obligatni robovlasnici (F. subintegra).Mravi ove grupe imaju medijalni usek na klipeusu i ovaj karakter služi za njihovo identifikovanje. Na terenu, njihova gnezda su uglavnom mešovitog sastava, sadrže jedinke sanguinea grupe i njihove robove. U jednoj populaciji F. pergandei zabeležene su jedinke vrsta robova F. fusca, F. subsericea, F. neogagates, F. lasioides i F. nitidiventris, ponekad čak svih u istom gnezdu.

Formica sanguinea mrav naseljava centralnu i severnu Evropu, Rusiju, Kinu, Koreansko poluostrvo i Japan). Fakultativni je robovlasnik. Dvobojan je - toraks i petiolus su crveni, a ostatak tela tamnije braon, siv do crn. Radnici su veličine do 7 mm. Naseljava uglavnom otvorena staništa. Kao fakultativni robovlasnik može formirati samostalne kolonije, ali takođe i porobljavati druge vrste uglavnom pripadnike istog roda.


Formica fusca (potpuno crni mravi) i F. sanguinea (dvobojni) u mešovitoj koloniji.


Parazitira na vrstama Formica fusca (podred Serviformica) i njenim rođacima (lemani, candida, rufibarbis, cunnicularia),pa čak i na mnogo jačim crvenim šumskim mravima (F. rufa, aquilonia, lugubris, pratensis i exsecta). U našim predelima najčešće parazitira na vrsti Formica fusca. Druge vrste kao što su Lasius niger, L. flavus, Myrmica scabrinodis i M. rugidnodis će takođe biti pljačkane ali samo u jako retkim slučajevima će se desiti da kao adulti služe kao robovi, verovatno zbog nekompatibilnosti u komunikaciji.

Formica fusca je uobičajeni crni mrav Evrope, njena gnezda se obično nalaze u trulim panjevima ili ispod kamenja u čistosečenim delovima šume i duž granica šuma i živice. Kolonije su poligine i gnezda su obično mala do 2000 radnika. Radnici su veliki od 8-10 mm, brzi i plašljivi, ako se uznemiri gnezdo brzo će pobeći u zaklon. U veštačkim uslovima ih je zbog toga teško izučavati, jer ovako reaguju i na najmanje vibracije, kao što je podizanje poklopca kontejnera. Hrane se malim insektima, mednim sokom sa biljnih vaši i sličnim. Formica fusca je najuobičajeniji rob većini robovlasničkih vrsta u Evropi.


Opis mrava : Formica sanguinea


Identifikacija

Na prvi pogled Formica sanguinea je slična sa Formica rufa. Može se razlikovati po sjajnoj crvenoj glavi i toraksu i sivom abdomenu. Mali radnici su tamniji i teže se razlikuju od F. rufa. Formica sanguinea je brz mrav i ne savija abdomen ispod zadnjih nogu kada prska mravlju kiselinu, kako to čini većina ostalih šumskih mrava. To je jedina vrsta kojoj udubljenje između mandibula služi u svrhu borbe. Radnici dostižu veličinu od 10 mm i više kada su uslovi povoljni.

Ishrana

F. sanguinea je predator insekata, hrani se i raznim slatkim supstancama koje nađe, skuplja medni sok sa biljnih vaši. U svojim pohodima na mlade drugih vrsta radi ishrane i radne snage napada različite vrste roda Formica: F. fusca, lemani, candida, rufibarbis, cunnicularia, rufa, aquilonia, lugubris, pratensis i exsecta. Najčešće, F. sanguinea će jaja, larve i lutke odneti nazad u svoje gnezdo i hraniti se njima.

Stanište

Preferira peskovita, osunčana staništa, posebno trula debla na granici četinarskih šuma. Kolonije dostižu veličinu od 10000 jedinki, dok u laboratorijskim uslovima mogu dostići preko 20000. U gnezdima se pored toga obično nalazi isti toliki broj jedinki robova. Pred zimu preseljava gnezdo u gušće lišće što umanjuje efekat mraza i vlage.

Napadi (racije)

Izviđači izlaze tokom jula i avgusta i pretražuju teren za gnezdima koja bi napali. Ostavljaju feromonske tragove koje pseudo izviđači, koji posle njih izlaze iz gnezda, mogu da prate i time sve više radnika polazi ka napadnutom gnezdu. Pri napadu formiraju odvojene grupe koje prilaze meti sa suprotnih krajeva. Često je okružuju sa svih strana gnezda. Napadnuta kolonija (zavisno od vrste) odgovara izlaskom hiljada jedinki iz gnezda koje formiraju odbrambeni obruč. Kada je meta gnezdo vrste F. fusca onda će napadati sa svih strana, a kada su u pitanju F. rufa obično snažno napadaju sa strane suprotne položaju njihovog gnezda i pozicioniraju značajne snage na potezu između dva gnezda na nekom odstojanju od napadnutog gnezda. Kada napad počne radnici F. rufa počinju evakuaciju mladih iz gnezda, beže sa što je više moguće svog potomstva i to u pravcu baš ovih snaga (jer je to jedini otvoreni put) koje onda lako otimaju mlade malobrojnim preostalim jedinkama. Kraljica F. sanguinea. nakon parenja se može vratiti u matičnu koloniju i pridružiti se sledećem napadu na gnezda domaćina, pri čemu će nakon napada ostati u njemu i osnovati novu koloniju. Paniku tokom napada iskoristiće da lako dođe do kraljice domaćina i ubije je.


Polyergus rufescens

Polyergus rufescens je vrsta submediteranskog rasprostranjenja. Smeđe je boje i radnici su veličine od oko 5-10 mm. Za razliku od F. sanguinea on je obligatorni robovlasnik. Kod njega se sem interspecijskog robovlasništva na F. fusca javlja i intraspecijsko robovlasništvo na drugim konspecifičkim gnezdima. U jednom radu (Moli, 1993) zabeležene su 4 intraspecifička napada na 3 kolonije P. rufescens tokom toplih sunčanih popodneva. Generalno, nije bilo sukoba između napadača i napadanih, i otimanje mladih trajalo je samo par minuta. Mladi su prebačeni u laboratorijske uslove gde su bili prihvaćeni od strane mešovite kolonije sačinjene od parazita i domaćina. Ovo je bio prvi zabeleženi slučaj funkcionalnog intraspecifičnog ropstva kod P. rufescens.

Formica rufa

Mravi Formica rufa grupe su veliki, agresivni i dominantni mravi u severnoj hemisferi. Evropske vrste spadaju u neke od retkih primera zakonski zaštićenih vrsta mrava zbog njihovog značaja u kontroli insekata štetočina šuma. Mnoge vrste rufa grupe grade velike kolonije izgrađene od trave i najčešće su privremeni socijalni paraziti nad F. fusca grupom. Formica rufa je česta vrsta u četinarskim i listopadnim šumama, radnici dostižu veličinu do 10 mm. Imaju velike mandibule i kao i mnogi drugi šumski mravi špricaju mravlju kiselinu iz abdomena u odbrani.

Šumski mravi Formica rufa špricaju mravlju kiselinu iz abdomena u toku odbrane

Formica rufa je primarno predator, uglavnom se hrani insektima i drugim beskičmenjacima, posebno biljnim vašima sa okolnog drveća, toliko da se u nekim slučajevima u šumarskoj industriji koristi kao biološka kontrola štetočina. Gnezda su joj obično na šumskim proplancima gde mogu biti obasjana suncem. Mogu dostići veličinu i do nekoliko metara u visinu i širinu. Izrazito su poligini i često re-usvajaju mlade oplođene kraljice nakon svadbenog leta što dovodi do starih, više-galerijskih kolonija koje mogu da sadrže i preko 100 kraljica. Agresivno je teritorijalna i često napada i premešta druge vrste. Svadbeni letovi se dešavaju u proleće i često su praćeni žestokim bitkama između susednih kolonija u vreme ustanovljavanja novih teritorijalnih granica. Ova vrsta može nove kolonije da ustanovljava i putem privremenog socijalnog parazitizma, kada joj kao domaćini služe pripadnici Formica fusca grupe, najčešće F. fusca i F. lemani, iako su kolonije u začetku F. rufa nalažene i u kolonijama F. glebaria, F. cunnicularia i sličnim vrstama uključujući i rod Lasius.

Komunikacija parazit-domaćin

Pri ulasku u koloniju domaćina, kraljice parazita su sposobne da upotrebe mehanizme međusobnog prepoznavanja radnika (pomoću hemijskih stimulusa) u sopstvenu korist i da njihovo altruističko ponašanje usmere ka njoj i njenim potomcima, a ne njihovim srodnicima iz gnezda. Mehanizmi kojima se kraljice paraziti služe jesu kamuflaža i mimikrija. Kamuflaža predstavlja usvajanje hemikalija domaćina putem socijalne interakcije, kako pasivne (slučajnim kontaktom sa domaćinima i supstratom iz gnezda) tako i aktivnom (negovanje od strane radnika i trofalaksis). Mimikrija je nasuprot tome biosinteza hemikalija specifičnih za domaćinsku vrstu. Kamuflaža i mimikrija se često zajedno primenjuju. Mimikrija može biti nepotpun vid prepoznavanja sa domaćinima jer se neke hemikalije domaćina menjaju od kolonije do kolonije, pa se samo kamuflažom može steći pravi miris baš te kolonije (Akino i Sar., 1999).

Nakon povređivanja ili ubijanja kraljice domaćina parazit Polyergus se trlja telom ubijene kraljice, valja se po supstratu i čak se pokriva njime par minuta i time dobija karakterističan miris kolonije i kraljice domaćina. Kraljice parazita se zato lakše integrišu u kolonije domaćina sa kraljicom, nego u one bez nje. Mlade domaće kraljice ne izazivaju napad, jer još uvek ne poseduju hemijski potpis tipičan za starije kraljice. Ukoliko više kraljica parazita P. rufescens uđe u koloniju domaćina samo ona koja prva dođe do kraljice, ubije je i primi karakterističan hemijski potpis od nje biće prihvaćena, dok će ostale biti ubijene. Nakon usvajanja u koloniju posle oko 5 dana, kraljice parazita će usvojiti karakterističan hemijski potpis sličan onom domaćinske vrste, što se može videti na rezulatima analize kutikularnih supstanci.

Hromatogrami kutikularnih hidrokarbona radnika Polyergus rufescens odgajanih od strane
 dve različite vrste domaćina (Formica gagates i F. rufibarbis). (D’Ettorre i Heinze, 2001)


Kraljice Polyergusa iz Duforove žlezde (koja se nalazi u unutrašnjosti abdomena, a čiji se sekret izbacuje kroz kloakalni otvor), luče supstance koje domaću kraljicu čine neprivlačnom za radnike, koji je onda odbacuju, pa čak i ubijaju, dok na same radnike deluje umirujuće i smanjuje agresivno ponašanje. Tako da, Polyergus kraljice koriste dve strategije pri upadu u novu koloniju: nedostatak sopstvenog mirisa (hemijska neznačajnost mladih jedinki) i sticanje hemikalija od domaće kraljice.

Druge vrste koriste slične strategije: Epimyrma kraljice glume smrt kada im se približe domaći radnici i sede danima u bliskom kontaktu sa Leptothorax kraljicom, sporo je ubijajući davljenjem. Nasuprot tome Harpagoxenus sublaevis agresivno napada i izbacuje sve adultne radnike i kraljicu domaćina. Koristeći supstance iz sekreta Duforove žlezde koje zbunjuju radnike domaćine i uzrokuju da se međusobno bore.

Diagram mrava radnika, koji prikazuje njegovu unutrašnju strukuturu i položaj Duferove žlezde.
Duferova žlezda proizvodi supstancu koju ostali mravi mogu osetiti i pratiti kao trag.
Pavanova žlezda sadrži otrov dok analna i mandibl žlezda proizvode hemikalijekoje se
koriste kao alarmni signali.


Vrste H. sublaevis, P. samurai i P. breviceps dele slične kutikularne supstance sa vrstama domaćina. Kada je u koloniji prisutno više vrsta domaćina onda hidrokarbonski obrazac kutikule predstavlja mešavinu obe vrste domaćina. Na ovaj način se F. sanguinea kamuflira kada se nađe u gnezdu sa F. polyctena. Nasuprot tome P. rufescens aktivno prilagođavaju svoj kutikularni profil menjajući relativnu količinu pojedinih supstanci na svojoj kutikuli kako bi što bliže odgovarala domaćinskoj. Na slici 6 vidimo primer kada P. rufescens pokazuje različite hidrokarbonske profile kutikule u zavisnosti od domaćina, iako sve jednike potiču iz iste matične kolonije. Paraziti Protomognathus americanus su zabeleženi kako obeležavaju radnike domaćina hemijskim supstancama koje ih sprečavaju da se vrate u svoju matičnu koloniju, tj. uzrokuju nekompatibilnost sa matičnom kolonijom verovatno u mirisu, što dovodi do odbacivanja od strane radnika i agresije.

Generalno posmatrano, mravi razvijaju specifičan miris tek posle nekoliko sati provedenih u koloniji (hemijska neznačajnost mladih jedniki). Mladi radnici su neagresivni, luče supstance koje indukuju negu i kontakt drugih radnika iste, ali i alovrsta. Dakle, ovaj mehanizam je široko prisutan kod mnogih vrsta mrava i u evoluciji on je predstavljao adaptivnu karakteristiku koja je omogućila lakšu integraciju mladih mrava u njihove kolonije. Ako pretpostavimo da će prvi mravi sa kojima dođu u kontakt nakon izleganja biti bliski srodnici (što u većini slučajeva jeste tako), onda ova karakteristika potpomaže altruizam među srodnicima i samim tim nastavak vrste. Mravi robovlasnici iskorišćavaju ovu adaptivnu karakteristiku i altruističko ponašanje mrava robova koje je evolutivno namenjeno bliskim srodnicima iz njihove kolonije i preusmeravaju ga ka sebi i sopstvenim potomcima.

U prvim satima života tek izleglog mrava dešava se imprintovanje mirisa starijih radnika u koloniji, bilo da su oni pripadnici njegove ili druge vrste. Ovo imprintovanje mirisa kolonije i njenih članova, dovodi i do toga da kod nekih vrsta robovlasnika, ako se jedna vrsta robova nađe u njemu ni jedna druga vrsta više neće biti prepoznata kao potencijalni plen pri racijama. Postoje i slučajevi kada se u koloniji može naći više vrsta domaćina, a imamo i primer kod Leptothorax acervorum i L. muscorum kada drugi prihvataju larve prvih, ali ne i obrnuto.

Evoluciono poreklo robovlasništva na primerima iz plemena Formicoxenini

Pojava robovlasništva prvi put je opisana još pre 200 godina (Huber,1810), i od tada je počela svojom specifičnošću da fascinira naučnike i zaljubljenike u prirodu. Mnogi su istraživali evoluciono poreklo i značaj ovakvog vida ponašanja i odnosa. Čak je i Čarls Darvin u svojoj knjizi O poreklu vrsta (1859) nekoliko strana posvetio složenom ponašanju mrava robovlasnika za vreme napada na gnezda robova. Dulosis se pojavio nezavisno u bar 9 navrata, u dve od 21 subfamilije mrava (Buschinger, 1986; Hölldobler i Wilson, 1990; Stuart, 2002).

Pleme Formicoxenini predstavlja hotspot u evoluciji robovlasništva, jer se u ovom malom plemenu koje čini samo 4% od ukupnog broja vrsta mrava nalazi čak 60% svih nezavisnih linija nastanka robovlasništva. Takođe i veliki broj vrsta inkvilina pripada ovom plemenu. Postavlja se pitanje zašto baš ovo pleme ima ovoliku zastupljenost socijalno parazitskih tipova ponašanja i koje njegove osobine su dovele do toga? O tome ćemo više reći nakon što bacimo svetlo na filogenetsku sliku robovlasnika i robova ovog plemena i evoluciju ovih odnosa.


Pleme Formicoxenini pripada podfamiliji Myrmicinae, najvećoj podfamiliji koja
broji 140 rodova u koje spada preko 6700 vrsta mrava i 800 podvrsta.


Različite linije robovlasnika u plemenu Formicoxenini pokazuju različite nivoe bogatstva vrstama. U liniji Myrmecoxenus javlja se 8 ili više morfološki sličnih vrsta, što ukazuje na adaptivnu radijaciju u ovom rodu. U drugoj monofiletskoj liniji imamo samo jednu vrstu Protomognathus americanus. Ovo ukazuje na hipotezu da starije linije sa dužim vremenom nezavisne evolucije (kao što je Myrmecoxenus) imaju i više vrsta. Istraživanje sprovedeno 2005. godine na uzorcima iz Evrope i Severne Amerike (Beibl i Sar., 2005) pokazalo je da postoji 6 monofiletskih konvergentnih linija sa pojavom robovlasništva u plemenu Formicoxenini. U istraživanje je uključena i vrsta inkvilina Temnothorax minutissimus koja je takođe jedna odvojena linija. Tih šest monofiletskih linija su robovlasničke vrste iz roda Chalepoxenus, Harpacoxenus, Myrmecoxenus, vrsta P. americanus, T. duloticus i dosad formalno neopisana vrsta roda Temnothorax.

Parsimonijskim i Bayes-ijanovim analizama mitohondrijalne DNK (gena za citohrom-oksidazu I i II) vrsta parazita i njihovih domaćina u istim kolonijama uočene је srodnost vrsta parazita i njihovih domaćina. Vrste robovlasnika iz roda Harpacoxenus (H. sublaevis i H. canadensis) pokazuju monofiliju sa vrstama domaćinima Leptothorax acervorum i L. canadensis. Neoarktički paraziti roda Temnothorax i njihovi domaćini čine monofiletsku granu. Temnothorax duloticus blizak je vrsti na kojoj parazitira T. curvispinosus i vrsti inkvilina T. minutissimus. Nova vrsta iz roda Temnothorax  je jako bliska T. longispinosus koja joj je domaćin. Svi ovi nalazi potvrđuju u velikom delu Emery-jevo pravilo (1909) koje navodi da je socijalni parazit, vrsta blisko srodna domaćinu, s tim da su obe vrste evoluirale od zajedničkog pretka. Uže tumačenje ovog pravila je da su parazitska i domaćinska vrsta sestrinske. Šire tumačenje je da su vrste domaćini pripadnici neparazitske klade koja je najbliža parazitu i da paraziti mogu proći kroz adaptivnu radijaciju pri kojoj će parazitirati i na manje bliskim vrstama domaćina (Buschinger, 1990). Mnogi naučnici su pristalice stava o sličnosti i zajedničkom poreklu vrste domaćina i parazita (Buschinger, 1990; Heinze, 1991,1995; Baur i sar, 1995).

Paraziti i njihovi domaćini su često i bliski rodjaci. Na primer, mravi
Formica fusca,  su najčešće porobljeni od strane mrava
koji su njihovi veoma bliski rodjaci.

Značajan izuzetak od ovog pravila predstavlja socijalni parazitizam koji se dešava između vrsta iz različitih podfamilija (Mashwitz et al. 2000). U ovom slučaju paraziti moraju prevazići razlike u komunikacionim sistemima i feromonima između sebe i domaćinske vrste, što je veliki izazov u vrstama koje nisu blisko srodne. Sada se možemo vratiti na razmatranje tako učestalog pojavljivanja robovlasništva u plemenu Formicoxenini. Postoje tri pretpostavke o uzrocima nastanka robovlasništva: predatorstvo, teritorijalnost, polidomija i poliginija. Teorija o predaciji (Darwin, 1859) kaže da je robovlasništvo nastalo tako što su mravi pre-paraziti napadali druge kolonije i otimali larve i lutke radi ishrane. Neka od tih jaja, larvi i lutaka su nakon donošenja u matično gnezdo, nekim slučajem ostala nepojedena i nakon izleganja su počeli da obavljaju funkciju radnika. Ova teorija je malo verovatna, jer su pripadnici plemena Formicoxenini generalisti u ishrani i ne hrane se drugim vrstama mrava.

Teorija o teritorijalnosti

Teorija o teritorijalnosti (Stuart i Alloway, 1982,1983) kaže da je robovlasništvo evoluiralo iz teritorijalnih borbi između susednih gnezda (konspecifičkih ili ne), pri kojima je oteti podmladak iz kolonije nošen u matična gnezda i tu je služio kao radna snaga. Viđano je da velike kolonije vrše invaziju na okolne kolonije iste vrste, i time otimaju njihovo potomstvo (Hölldobler, 1976; Pollock i Rissing, 1989). Takođe, uočene su i kolonije u kojima su povremeno (dakle, ne kao pravilo), kao radnici primećene jedinke drugih vrsta, što ukazuje da se i interspecifički napadi takođe dešavaju (Kutter, 1957; Alloway, 1980). Treba naglasiti da se kada navodimo ove podatke misli na vrste koje nisu robovlasničke i da im se ovakav vid ponašanja samo sporadično javlja. U laboratorijskim uslovima uočeno je da kolonije neparazitske Leptothorax sp. i Temnothorax sp. vrše napade na okolne kolonije iste vrste na vrlo organizovan način i da ovakvi intraspecifički napadi mogu biti polazna tačka za evoluciju robovlasništva (Wilson, 1975; Alloway, 1980; Stuart i Alloway, 1982, 1983; Pollock i Rissing, 1989). Međutim, teorijska razmatranja i terenska posmatranja pokazuju da mravi sa malim kolonijama kakav je i Leptothorax i generalno gledano pripadnici plemena Formicoxenini retko brane teritoriju, već uglavnom nežno uklanjaju uljeze samo iz vrlo bliske okoline gnezda, ne sprovode žestoke, organizovane teritorijalne bitke.

Teorija o polidomiji i poliginiji

Teorija o polidomiji i poliginiji kao uzroku nastanka robovlasništva (Wasmann,1909; Buschinger, 1970,1990; Elmes, 1973, 1978; Bourke i Franks, 1991) kaže da poreklo zasnivanja paraziske kolonije možemo naći u povratku oplođenih mladih kraljica u matičnu koloniju, a napadi sa otimanjem podmladka su mogle evoluirati od transporta mladih između različitih kolonija jednog polidomnog društva. Međutim, problem u ovom tumačenju je što u ovom vidu transporta ne može se nađe način za evoluciju agresivnih napada, izviđanja i borbe. Polidomija i poliginija su česte u Formicoxenini plemenu kao i u plemenu Formicini, koje je hotspot robovlaništva u drugoj podfamiliji mrava u kojoj se javlja socijalni parazitizam, što ide u prilog ovoj teoriji. Spajanjem dve poslednje teorije, o teritorijalnosti i polidomiji i poliginiji Alloway (1980) i Alloway i Stuart (1983) predlažu da je robovlasništvo nastalo od pljačkanja podmladka i teritorijalnih bitki kod poliginih, polidomih vrsta kod kojih su nove kolonije osnivane re-usvajenjem mladih kraljica i fisijom kolonije, pre nego solitarnim osnivanjem.

Pitanje porekla robovlasništva, a i svih ostalih tipova socijalnog parazitizma ostaju otvorena. Podaci iz mnogih grupa socijalnih parazita još uvek nedostaju i tek nakon njihovog pribavljanja mogla bi se dobiti potpunija slika o evoluciji ovih vidova ponašanja. Jasno je da se nijedan tip socijalnog parazitizma ne može izučavati odvojeno od ostalih, jer jedni verovatno predstavljaju izvor za nastanak drugih i često su granice između njih nejasne. Nova istraživanja su usmerena izučavanju mehanizama komunikacije između domaćina i parazita, reproduktivnih konflikata i odnosa raspodele polova, evoluciono-genetičkim ispitivanjima. Posebno se puno očekuje od rezultata istraživanja dosad neobrađivanih grupa, koje možda u sebi kriju nedostajuće karike u evoluciji socijalnog parazitizma, kao što su na primer brojni parazitski rodovi iz plemena Formicoxenini koji su vrlo značajni sa aspekta istraživanja socijalnog parazitizma generalno i odnosa između porekla robovlasništva i inkvilizma (D’Ettorre i Heinze, 2001).

Autor, Čučak Dragana, Prirodno-matematički fakultet, Departman za biologiju i ekologiju,
Univerzitet Novi Sad

Reference

Agosti, D., and N. F. Johnson. Editors. 2005. Antbase. World Wide Web electronic publication. antbase.org, version (05/2005). (Internet, dostupno na http://antbase.org/, datum prristupa stranici 1. februar 2011.)
Ant Blog, 2011. (Internet, dostupno na http://www.antblog.co.uk/species/formicasanguinea.htm , datum pristupa stranici 1. februar 2011.)
AntWeb 2002-2011. (internet, dostupno na http://www.antweb.org/index.jsp, osnovan od The California Academy of Sciences, datum pristupa stranici 9. januar 2011.)
Beibl, J.,R.J.Stuart ,J.Heinze and S.Foitzik, 2005. Six origins of slavery in formicoxenine ants. Insectes Sociaux, 52 : 291-297. (Internet, dostupno na http://www.springerlink.com/content/x841947441q3h68r/, datum prristupa stranici 1. februar 2011.)
Buschinger, A., 2009. Social parasitism among ants: a review (Hymenoptera: Formicidae). Myrmecological News 12: 219-235. (Internet, dostupno na http://www.myrmecologicalnews.org/cms/images/pdf/volume12/mn12_219-235_non-printable.pdf, datum pristupa stranici 1. februar 2011.)
D’Ettorre, P. i Heinze, J., 2001. Sociobiology of slave-making ants. Acta ethologica, 3: 67-82. (Internet, http://www.springerlink.com/content/cj1arl0gqb2amw7h/, datum pristupa stranici 1. februar 2011.)
Darwin, Charles, 1859. On the origin of species. Poglavlje VIII. (dostupno na http://www.classicreader.com/book/107/57/ ,datum pristupa stranici 1. februar 2011.)
Deslippe,R. 2010. Social Parasitism in Ants. Nature Education Knowledge1(8):27. ((Internet, dostupno na http://www.nature.com/scitable/knowledge/library/social-parasitism-in-ants-13256421, datum prristupa stranici 1. februar 2011.)
Embery, Joan with Ed Lucaire. 1983. Collection of Amazing Animal Facts. (Internet http://hypertextbook.com/facts/2003/AlisonOngvorapong.shtml, datum pristupa stranici 1. februar 2011.)
Emery, C. Über den Ursprung der dulotischen, parasitischen und myrmekophilen Ameisen. Biologisches Centralblatt 29, 352-362 (1909).
Moli, F., Grasso, D. A., D'Ettorre P. i Mori, A., 1993. Intraspecific slavery in Polyergus rufescens Latr. (Hymenoptera, Formicidae): field and laboratory observations. Insectes Sociaux. 40: 433-437. (Intenet dostupno na http://www.springerlink.com/content/u737162342472xq5/, datum pristupa stranici 1. februar 2011.)
Mori, A. i Le Moli, F. 1998.Mating Behavior and Colony Founding of the Slave-Making Ant Formica sanguinea (Hymenoptera: Formicidae). Journal of Insect Behavior, 11(2): 235-245. C http://www.springerlink.com/content/pl828gqk23125r25/ , datum pristupa stranici 1. februar 2011.)
Wilson, 1984. Tropical social parasites in the ant genus Pheidole, with an analysis of the anatomical parasitic syndrome (Hymenoptera: Formicidae). Insectes Sociaux.31(3)3: 316-334. (Internet, dostupno na http://www.springerlink.com/content/3406141p38208676/ , datum pristupa stranici 1. februar 2011.)

Averzija životinja prema nepravdi i uvod u eksperimentalnu ekonomiju

Mnogim roditeljima je dobro poznato da svaki put kada kupuju novogodišnje poklone svojoj deci, pored toga što moraju brinuti o tome da poklon bude poseban, moraju voditi računa i o tome da svako dete dobije približno istu vrednost poklona. U suprotnom, svi znamo ishod : dete koje dobije manje vredan poklon, osetiće nejednakost i ubrzo će doći do svadje. Ovde dolazimo do pitanja: da li takvo ponašanje deca stiču kroz kulturno nasledje ili je u pitanju ponašanje koje ima mnogo dublju biološku osnovu ?

Naučnicima je već duže vreme poznata činjenica da ljudi pokazuju veliku averziju prema medjusobnoj nejednakosti. Fenomen je poznat kao "inequity aversion". I ne samo to, Ernst Fehr i Urs Fischbacher (2004), u svom radu "Social norms and human cooperation" (kompletan pdf), sugerišu da će i treća lica koja ne osećaju direktno patnju zbog te nejednakosti takodje osećati averziju prema njoj. Ona će čak rado učestvovati i u kažnjavanju krivca koji nanosi nejednakost i u onim situacijama kada je takva akcija poprilično "skupa" (pdf). Takodje, ljudska potreba za reakcijom (osvetom) na nejednakost i nepravdu ostavlja merljive tragove i na neuronima mozga (Sanfey et al, 2003).

Medjutim, šta je sa neravnopravnošću medju životinjama? Da li i one imaju osećaj za pravičnost ? Jesu li u stanju uopšte da prepoznaju takve situacije? Kako reaguju? Više eksperimenata je sprovedeno kako bi se pronašao odgovor i na to pitanje, uglavnom na našim rodjacima primatima (šimpanzama i bonobo šimpanzama) ali i na vrstama koje nisu primati, kao što su recimo psi. Krenimo prvo od njih.

Jednostavan eksperiment sa psima

Familija Canidae u koje spadaju i domaći psi, njihovi rodjaci vukovi, šakali i afrički divlji psi, veoma su društvena bića. Oni imaju razvijeno ponašanje roditeljske brige, kooperativnog lova, socijalnu hijerarhiju i u stanju su da obeležavaju svoju teritoriju i da je zajednički brane. Naučnici neurobiologije sa Univerziteta u Beču, sproveli su jedan veoma elegantan i jednostavan eksperiment (pdf) pravičnosti na psima. Uz malo truda verovatno biste mogli i sami da ga isprobate kod kuće.

Svaki pas iz jednog para je zamoljen da pruži šapu i za to bude nagradjen. Medjutim, nagrade
su u odredjenim situacijama namerno bile različite a nekada čak i potpuno izostavljene

Istraživači su testirali parove pasa koji su živeli zajedno u istom domaćinstvu najmanje godinu dana. Svi ovi psi su bili prethodno obučeni da pruže šapu na komandu. Od svakog para pasa je zatraženo da sedne ispred osobe (jedan pas bi bio "subjekat"  a drugi bi bio "partner"). Pas subjekat je onaj čija nas reakcija u svakoj od situacija zanima.  Testirano je 6 različitih situacija i svaka od situacija je ponovljena više puta, a istraživači su merili koliko će puta pas subjekat dati šapu.:
  • U prvoj su situaciji, oba psa zamoljena da pruže šapu, i obojica su nagradjena sa "manjom vrednošću", to jest svaki bi dobio po komadić hleba. 
  • U drugoj su situaciji, oba psa su zamoljena da pruže šapu, pas subjekat je nagradjen sa "malom vrednošću" (komadom hleba), dok je njegov drugar nagradjen sa "većom vrednošću" (komad kobasice).
  • U trećoj su situaciji, oba psa zamoljena da pruže šapu, ali ovaj put samo je pas partner bio nagradjivan sa komadom hleba, odnosno, pas subjekat nije dobijao ništa.
  • U četvrtoj je situaciji, samo od psa subjekta zatraženo da pruži šapu. Oba psa su nagradjivana sa komadom hleba.
  • U petoj su situaciji, naučnici merili koliko puta će pas subjekat pružiti svoju šapu za komad hleba, ako njegov pas (partner) nije bio u prostoriji.
  • U poslednjoj su situaciji, naučnici su merili koliko puta će pas subjekat pružiti svoju šapu bez ikakve nagrade, ako njegov pas (partner) nije bio u prostoriji.

Evo šta kažu rezultati. Kada bi oba psa dobijala po komad hleba (jednaku nagradu male vrednosti) , oni su bili srećni i voljni da pruže svoju šapu koliko god puta bili zamoljeni. Kada bi pas subjekat dobijao komad hleba a njegov partner komad kobasice (nagrade sa nejednakim vrednostima), opet bi oba psa rado pružala svoju šapu. Ali, kada bi jedan pas video da njegov drugar dobija parče hleba a da on nije dobio ništa (potpuno odsustvo nagrade), ubrzo bi odbio poslušnost, ne bi pružio šapu i počeo bi pokazivati znake stresa. Ukoliko pomislite da je ovo upravo ono što se dešava kada prestanete nagradjivati psa za ono što tražite, e pa nije - zapravo se ovde dešava nešto malo drugačije.

Ukoliko pas subjekat ne dobija nikakvu nagradu (ni komad hleba), on će skoro uvek pružiti šapu, ali samo ukoliko njegov partner nije tu (jer neće imati na osnovu čega da uporedi koliko vredi njegov trud). Ukoliko je njegov partner tu, pas subjekat će odbiti poslušnost samo ukoliko vidi da njegov partner dobija poklon a on ne. Ovo jasno dokazuje da psi imaju osećaj pravičnosti i da znaju da različita nagrada za jednak rad nije fer.

Medjutim, kod psa je njegova procena pravičnosti ograničena. Dokle god on dobija svoju nagradu (bez obzira da li to bio hleb ili komad kobasice), on će pružiti svoju šapu. Psi izgleda ne brinu puno (ili možda uopšte ne primećuju) koju vrednost nagrade je dobio njihov drugar. Tako da ako nagradjujete svog četvoronožnog prijatelja, ne brinite previše o vrednosti poklona, bitan je gest.

Pogledajmo sada kako stvar stoji kod naših rodjaka primata.

Eksperiment na majmunima : Krastavac ili groždje ?

Jedan od čuvenih eksperimenata kojeg su još tokom 2003. godine sproveli Sarah Brosnan i Frans de Waal, (kompletan pdf) izveden je sa kapucin majminima (engl. capuchin).Ovi majmuni pripadaju podredu primata koji se naziva majmuni Novog Sveta (nazivaju se tako jer naseljavaju Centralnu i Južnu Ameriku).

Istraživači su prvo naučili nekoliko parova majmuna da razmenjuju žetone (novac) za hranu. Majmuni bi uvek bili srećni kada bi takve žetone mogli da razmene za komad krastavca. A onda su istraživači uneli u eksperiment element nepravde. Jedan majmun je počeo dobijati groždje za svoje žetone a drugi i dalje komade krastavca. Pošto majmuni daleko više vole groždje, majmun subjekat koji je dobijao krastavac je počeo pokazivati znake stresa, odbijao je čak da pojede svoj krastavac izbacujući ga van kaveza.


Kao što se može videti na videu (koji je u svojoj TED prezentaciji koristio Frans de Waal), odgovor nezadovoljnog majmuna je dramatičan, jer nikada ranije nije bio u situaciji da bude manje nagradjen. Nikada ranije ni jedan od majmuna ne bi bacio krastavac, skoro svaki krastavac bi bio pojeden. Ovi rezultati jasno ukazuju da primati pokazuju barem primitivan oblik averzije prema nejednakosti, što može biti pretečom višem obliku ove sofisticirane osetljivosti u socijalnim interakcijama.

Pošto je tadašnja studija izazvala velike kontraverze, pojavile su se pojedine sumnje da majmun subjekat možda i ne reaguje na nepravičnost, već je samo iritiran time što je kvalitetna hrana ispred njega. Pretpostavljalo se da njemu zapravo ne smeta to što je partner dobio groždje, već ga iritira to što je bolja hrana tu a on je ne dobija.

Te sumnje su definitivno otklonjene par godina kasnije, kada su Michael Tomasello i njegov tim ponovili sličan i daleko opsežniji eksperiment  na znatno više vrsta primata. Tačnije, na 7 orangutana, 6 gorila, 4 bonobo šimpanzi i 13 običnih šimpanzi. Rezultati su ponovi potvrdjeni, uz odredjene dopune, naravno u zavisnosti od  primata. Korištene su različite nagrade, i vodjeno je mnogo više računa o svim situacijama. Majmun "partner" bi ponekad bivao udaljen iz prostorije. Za više detalja i metodologiju pogledati studiju.

Igra ultimatuma : Eksperiment sa decom i šimpanzama

Sledeći eskperiment je mnogo novijeg datuma (2012. g.) i njega su izveli dr. sc. Darby Proctor i Rebecca A. Williamson, istraživači centra za primate Yerkes pri Univerzitetu Emory  (kompletan pdf). Sve do njega, niko nije očekivao da se "igra ultimatuma“ može igrati sa životinjama, a kamoli da će životinje odabirati najsebičniju opciju. Rezultati su pokazali ne samo da su šimpanze vrlo blizu ljudskom smislu pravednosti, nego i da mogu imati iste sklonosti po tom pitanju kao i ljudi. Sprovedeno je i odvojeno istraživanje sa ljudskom decom, istraživači su testirali šest odraslih šimpanzi (Pan troglodytes) i dvadesetoro ljudske dece (2 do 7 godina).

U njemu, subjekat A predlaže podelu nagrade subjektu B, ali tako da subjekat B podelu prihvati kako bi oba subjekta mogla dobiti nagradu. Kao zamena za nagradu kod šimpanzi je korišćena mala količina hrane (komad šargarepe ili slično), a kod dece mala ukrasna nalepnica. Ljudi obično nude velikodušan deo svojim partnerima - 50% nagrade - a to je upravo ono što je zabeleženo i u studiji sa šimpanzama.

I šimpanze i deca reagovali su onako kako obično i odrasli ljudi reagiraju. Ako je nužna saradnja sa partnerom, i šimpanze i deca su ravnopravno podelili nagradu. Ono što je važno napomenuti, kad god bi imalli pasivnog partnera (koji nije imao priliku da odbaci ponudu) i šimpanze i deca izabrali bi gotovo uvek sebičnu opciju.

Dakle, da li je osećaj pravičnosti samo ljudska kulturna konstrukcija ili ipak ima mnogo dublje evolucione korene ? 

Ovaj niz istraživanja ozbiljno potkopava tvrdnje da je osećaj za pravičnost svojstven samo ljudima i da je kao takav plod kulturne konstrukcije koja odlikuje isključivo ljudsku vrstu. Postoji više objašnjenja zašto takvo ponašanje ima i evolucionu prošlost, zašto se razvijalo kod drugih vrsta i kakvu konkretnu korist pruža jedinki koja ne želi da bude tretirana nepravedno.

Zoolog i psiholog Sarа Brosnan, smatra da upravo taj oblik ponašanja može biti ključan za evoluciju kooperativnosti medju jedinkama iste vrste jer osetljivost prema naporima drugih i proračunatost sopstvenih troškova/dobiti jeste ključna prilikom interakcije. Jedinke sa razvijenim osećajem za pravičnost povećavaju svoje šanse za fitnes (tzv. fitness benefit). Takodje, činjenica da se averzija sreće i kod pasa (canidae) koji su biološki gledano, veoma udaljena grana od grane primata, ukazuje na to kako je sasvim moguće da se ponašanje može sresti i kod drugih životinja a ne samo na primatima. Problem je jedino u tome što ovakvih istraživanja i nema baš puno, pa mnogi slučajevi još nisu poznati biolozima i psiholozima.

O istoj fitness benefit teoriji govore i radovi drugih istraživača, medju kojiima je i ovo kojeg su sproveli Jefreey Stevens i Ian C. Gilby (pogledati pdf studije), a koje se bavi deljenjem hrane medju jedinkama iste vrste koje nisu u bliskom srodstvu. Oni su jasno pokazali koje neposredne koristi mogu imati životinje od povećanja efikasnosti u takvim vrstama interkacije, izbegavanje predatora, brže ostvarivanje parenja, itd.  Takodje ukazuju i na to kako se reciprocitet i razmena postepeno otežavaju u odnosu na to kako se broj jedinki u grupi povećava.

Uporedjivanje vrednosti truda/nagrade kod Homo sapiensa

Kao i ostala bića na planeti, ni mi ljudi ne živimo u svetu apsolutnih vrednosti, nego u onom čije vrednosti moramo stalno da uporedjujemo sa drugima oko nas, kako bismo saznali njihovu relativnu vrednost (onu koja važi  za nas). Kao i kod kapucin majmuna, ako ulažemo trud i rad potrebno nam je da uporedimo njegovu vrednost sa onom koju drugi dobijaju za sličan takav trud i rad. Mi koristimo uporedjivanje da dodjemo do zaključka jesmo li pravično nagradjeni ili ne.

Istim mehanizmom uporedjivanja mi prepoznajemo šta je socijalna nejednakost i identifikujemo je kao nepravdu (na primer, kada smatramo da neki zaposleni imaju preterano niske zarade a što je posledica društvene nejednakosti i različitih socio-ekonomskih statusa).

Medjutim, za razliku od majmuna mi nećemo tek tako odbaciti ono što nam se nudi, osim ako ne uvidimo da ćemo tim odbijanjem ponude možda smanjiti zaradu lica koje je daje nama, čime ćemo možda našu zaradu tako približiti njegovoj i tako smanjiti nejednakost. Zbog velikog značaja u sociologiji i psihologiji "inequity aversion" je u zadnjim decenijama bila često ozbiljna tema rasprave i medju ekonomistima.  Većina ekonomskih modela zasnovana je na hipotezi da su ljudi isključivo motivisani sopstvenim interesom. Medjutim, prema rezultatima brojnih eksperimenata koji su se nizali a koji se tiču istraživanja averzije prema nejednakosti medju ljudima, počele su se pojavljivati i druge hipoteze.

Uvod u eksperimentalnu ekonomiju i igre tržišta

Jedan od tipičnih primera koji opisuje ovaj koncept može biti neoklasična teorija tržišta rada. Ova je teorija,  zasnovana  na pretpostavci da relativno slobodno i otvoreno tržište rada predstavlja sistem u kojem se pojedinci ravnopravno takmiče za što bolju poziciju u istom. Položaj na takvom tržištu u velikoj meri bi trebao da zavisi od napora pojedinca, njegovih sposobnosti, iskustva, obučenosti, znanja, itd. Primera radi, prema klasičnom teorijskom modelu, ukoliko se dogodi da odredjeni poslodavac previše spusti cenu radnog sata zaposlenima, njegovi radnici će ga napustiti i preći kod konkurenta. Što će reći, poslodavac ima dva izbora ili da poveća nadnicu ili da ostane bez radnika i potpuno bankrotira. Slično može da zadesi i onog poslodavca koji preterano poveća nagrade radnicima a da to nije u skladu sa prihodima/rashodima koje ostvaruje, jer će i on verovatno završiti sa gubitkom.

Na ovaj način slobodno tržište rada samo sebe balansira. Teorijski gledano, u interesu je svih ljudi da na takvom tržištu postoji što veća pravičnost u raspodeli dobiti prema vrednosti uloženog rada, jer će tako svi učesnici na tržištu biti zadovoljni. Medjutim, u praksi je stanje poprilično drugačije, postoje i dalje disbalansi i nejednakosti koje ozbiljno ugrožavaju stabilnost celog tržišta. Postoje i dalje igrači koji igraju mnogo sebičnije nego što bi se očekivalo, te tako unose nejednakost i produbljuju jaz koji inicira sve veći bes i nezadovoljstvo kod većine. Ovo se dalje u praksi manifestuje radničkim štrajkovima i sličnim oblicima revolta. Pitanje koje ostaje jeste - zašto se pojavljuju takvi igrači koji igraju previše sebično ? Kako i na koji način regulisati tržište tako da pravičnost bude što veća a  istovremeno ne ugroziti efikasnost i stabilnost celokupnog sistema ?


Upravo takvim i sličnim pitanjima se bavi eksperimentalna ekonomija. U poslednjoj deceniji , neki naučnici eksperimentalne ekonomije pokušali su da prikupe dokaz koji bi sistematski pobio hipotezu o sebičnosti i ukazao na to da su mnogi ljudi snažno motivisani brigom za pravičnost i opštim reciprocitetom. Jedan od čuvenih i često pominjanih radova (prvi pdf, drugi pdf) koje su objavili Ernst Fehr and Klaus M. Schmidt  poprilično se oslanjaja na ovaj biološki fenomen.

Ernst i Klaus su pokušavali da pokažu da postoje sredine u kojima će ponašanje manjine (veoma sebičnih ljudi) vremenom primorati i većinu fer-orijentisanih ljudi da se ponašaju na potpuno sebičan način. Na primer, u njihovim eksperimentima tržišnih igara (a koje su bazirane na konkurenciji) pokazivalo se da je za fer-plej igrače u takvom okruženju gotovo nemoguće da postignu fer ishod.

Elem, valja napomenuti da je bilo i onih ekonomskih istraživača koji se ne slažu sa takvom idejom. Jedan od bitnijih tekstova koji je obeležio taj sukob je i ovaj čiji je autor Avner Shaked. Avner naravno nije pokušao da obara "inequity aversion" ponašanje, tako nešto već ne bi imalo smisla. Ali je zato pokušao da do detalja razloži njegovu primenu na ekonomske modele i time dovede u pitanje ono do čega su Ernst i Klaus ranije došli u svojim studijama. Ukoliko vas priča interesuje i voljni ste da saznate još, ovde je i njihov odgovor na upućene kritike.

Reference

  • Range F, Horn L, Viranyi Z, & Huber L (2009). The absence of reward induces inequity aversion in dogs. Proceedings of the National Academy of Sciences of the United States of America, 106 (1), 340-5 PMID: 19064923
  • Range, F., Leitner, K., & Virányi, Z. (2012). The Influence of the Relationship and Motivation on Inequity Aversion in Dogs Social Justice Research, 25 (2), 170-194 DOI: 10.1007/s11211-012-0155-x Henrich, J. (2004) Animal Behaviour (communication arising): Inequity Aversion in Capuchinс
  • Jensen, K Call, J Tomasello, M (2007) Chimpanzees are Rational Maximizers in an Ultimate Game. Science. 318, 107 – 109
  • Range, F Horn, L Viranyi, Z Huber, L (2008) The Absence of Reward Induces Inequity Aversion in Dogs. PNAS. 106, 340 – 345
  • Stevens, J R Gilby, I C (2004) A Conceptual Framework for Nonkin Food Sharing: Timing and Currency of Benefits. Animal Behaviour. 67, 603 – 614.
  • Wynne CDL. Fair refusal by capuchin monkeys. Nature. 2004;428:140. [PubMed]
  • Brosnan SF, de Waal FBM. Monkeys reject unequal pay. Nature. 2003;425:297–299. [PubMed]
  • Brosnan SF, Schiff HC, Waal FBM. Tolerance for inequity may increase with social closeness in chimpanzees. Proc R Soc
  • Bräuer J, Call J, Tomasello M. Are apes really inequity averse? Proc R Soc London Ser B. 2006; 273:3123–3128.
  • Fehr, Ernst and Klaus M. Schmidt, 1999. ìA Theory of Fairness, Competition and Co-operation.îQuarterly Journal of Economics, 114, 817-868
  • Fehr, Ernst and Klaus M. Schmidt, 2003. Theories of Fairness and Reciprocity: Evidence and Economic Applications
  • L.P. Hansen, S. Turnovski, Advances in Economic Theory, Eighth World

Knjiga: Zašto je evolucija istinita? - Jerry A. Coyne; Mitovi o "slučajnosti" u evoluciji i odnos sa inteligentnim dizajnom

Jerry Coyne, profesor biologije sa Univerziteta u Čikagu, i autor popularnog i istoimenog bloga  objavio je veoma edukativnu knjigu pod nazivom "Zašto je evolucija istinita ?". Danas možda niko više ne bi razmišljao o pisanju knjige sa dokazima da li postoji atom, ili zamislite nešto poput naslova "Da li se Zemlja vrti oko Sunca?". Pa zašto nam je onda kada je i evolucija toliko puta obrazložena i svakodnevno prisutna, i kada čini okosnicu moderne biologije, genetike i medicine, i dalje potrebna knjiga "Zašto je evolucija istinita" ?

Verovatno zato što je situacija sa evolucijom mnogo drugačija. Nijedna druga oblast nauke nije predmet takvog obima nerazumevanja i takvog namernog dezinformisanja. Evolucija je izuzetno osetljiva tema za nas Homo sapiense jer nas dovodi licem u lice sa onim ko smo i koliko smo duboko povezani sa životinjama, biljkama i bakterijama, kao i sa milionima generacija živih bića koja su nekada živeli na ovoj planeti​​. Previše često pominjanje evolucije nekad proizvodi anksioznost i konfuziju, Coyne u svojoj knjizi pokušava da eliminiše tu konfuziju i ujedno izvlači zapanjujući spektar savremenih dokaza koji podržavaju evoluciju. Ova knjiga pokazuje da je evolucija ništa drugo do - činjenica. Činjenica koju treba prihvatiti bez ikakvog straha.


Preuzmi knjigu,  330 strana


Iako sam naziv možda više podseća na propagandu a ne na naučnu literaturu, razlog je taj što Coyne pokušava trgnuti i onaj deo hrišćanske publike koji se i dalje žestoko protivi evoluciji. Takodje, potrebno je razumeti i naučni koncept istine - sva naučna istina je privremena i podložna promeni u svetlu novih dokaza. Ne postoji zvono za uzbunu koje će naučniku dati informaciju da je pogodio cilj niti da je stigao na krajnje odredište.  Zaista, teorija evolucije, kao što se u knjizi može videti, ne razlikuje se od bilo kojeg drugog naučno-teorijskog okvira, i kao takva je predmet stalne modifikacije i promena kako se nove stvari otkrivaju i uče.

Širina i jasnoća objašnjenja kojima autor potkrepljuje evoluciju je impresivna. Hrišćani koji su čak i minimalno zainteresovani za nauku bi joj trebali dati šansu, ili kako on to kaže - pažljivo molitveno razmišljanje. Knjiga je korisna i za rešavanje iskrivljenih i uobičajenih mitova koji su karakteristični za hrišćansku diskusiju teorije evolucije. U prvom delu on razmatra neke od ključnih mitova i ukazuje kako jedino rasprava može da pomogne kreacionistima da dobiju preciznije razumevanje o tome šta evolucija kaže i šta zaista govori. U nastavku smo izdvojili neke od tih mitova.

Mit: Sve u evoluciji se odvija slučajno

Kreacionisti (ali i dobar deo ateista) često karakterišu evoluciju kao da isključuje Boga, jer su navodno varijacije koje čine srce evolucione teorije zapravo "slučajne" i "neplanirane". Oni koriste takve termine da bi ukazali na to da nikakav "viši" plan ne uzrokuje niti upravlja genetskim varijacijama. Medjutim, kako objašnjava Coyne  termin 'slučajno' ovde ima specifično značenje koje je često pogrešno shvaćeno, čak i kod biologa. Ono što jeste je da se mutacije dešavaju - bez obzira na to da li će biti korisne za pojedinca ili ne.Priroda nekad greši i to je činjenica. Nekada (izuzetno retko) neke od tih grešaka mogu pružiti poboljšanja na organizmu ali u većini slučajeva takve greške su neutralne ili štetne.

Uzmimo analogiju sa igrama na sreću. Kockice se bacaju i odredjena kombinacija će doneti dobit kockaru. Ipak, postoji osnovni skup prirodnih zakona i uzroka koji vode do toga zašto su kockice pale baš na taj način, ali ipak kad govorimo o bacanju kockica mislimo na ishod kao slučajan ili neusmeren. Slično tome, postoje uzroci zbog kojih je odredjeni potomak u populaciji organizama dobio neke posebne genetske varijacije u odnosu na ostale.

Zaista, biološki pojam slučajnih mutacija ili neplaniranih mutacija čak ne isključuje Boga kao mogući uzrok takvih varijacija. Biolozi pod tim terminima samo ukazuju na to da su osnovni uzroci ostaviljeni kao otvoreni prema evolucionoj teoriji, jer mehanizam poput prirodne selekcije može da radi sa bilo kojim varijacijama koje su mu dostupne, bez obzira da li su te genetske razlike posledica pogrešnog genetskog kopiranja, kosmičkih zraka ili Boga.

Tipično je za kreacionističke tvrdnje da sve što u evoluciji postoji pridaju - slučajnosti. Nasuprot tome, autor ističe, da iako čak u tehničkom smislu sama varijacija u organizmu nije slučajna (na samom dnu je barem uzrokovana fundamentalnim zakonima fizike, elektromagnetnim interakcijama medju atomima koji dalje utiču na organske molekule, itd), filtriranje te varijacije prirodnom selekcijom koje će proizvesti adaptacije očigledno nije slučajno (str. 119). Varijacije koje je neki organizam primio su indiferentne prema samim potrebama tog organizma, ali filtriranje štetnih varijacija je sve - samo ne slučajno. Tim filtriranjem prirodna selekcija omogućava opstanak i dalju reprodukciju, što svakako nije slučajan ishod.

Mit: Evolucija radi isključivo kroz prirodnu selekciju i slučajne varijacije

Većina hrišćanskih kreacionističkih autora često će u svojim argumentima protiv evolucije koristiti tvrdnje da evolucija koristi isključivo prirodnu selekciju koja deluje na slučajne varijacije i tako kreira biološke promene. Ovo je opet preterano usko vidjenje evolucije, koje je možda u velikoj meri inspirisano i nekim ateistima koji su često opisivali evoluciju da funkcioniše samo kroz prirodnu selekciju. Iako autor takodje fokusira svoja objašnjenja prvenstveno na prirodnoj selekciji, on posebno naglašava da postoji mnogo toga više u evoluciji nego što je "prirodna selekcija koja deluje na slučajnim varijacijama" (npr. str 3, 13, 122-124, 170, 177).

Darvin je takodje tvrdio da je prirodna selekcija najvažniji mehanizam evolucije, ali je naglasio da postoje i drugi mehanizmi, medju njima i jedan mnogo bitan  (npr. seksualna selekcija). Savremeni evolucioni biolozi takodje istražuju komponente evolucije van opsega prirodne selekcije. Genetički drift, na primer, je važna komponenta u evolucionoj teoriji (posebno na molekularnom nivou). Eksaptacija (engl. exaptation) je još jedna važna komponenta u proizvodnji novih struktura sa novim funkcijama.

Dešava se kada funkcija, koja se prvobitno prilagodila tokom prirodne selekcije, dobije sasvim novu ulogu a onda nastavi dalje sa prilagodjavanjem u odnosu na onu početnu funkciju. Jedan primer bi bio perje. Danas je poznato da je većina dinosaurusa mesoždera (teropoda) u koje spada recimo Deinonychus, Velociraptor ali i čuveni  T. rex  bila prekrivena perjem. Perje je verovatno nastalo pod pritiskom prirodne selekcije usled  potrebe bolje toplotne regulacije telesne temperature.


Yutyrannus (u prevodu tiranin sa perjem) je rod tiranosaurusa koji je pronadjen u predelu Kine.
Predstavlja jedan od najvećih fosila dinosaurusa i direktan dokaz da je bio prekriven perjem.

Fosilni zapisi govore da se dinosaurusi prekriveni perjem pojavljuju dosta ranije pre pojave letećih bića. Vrlo je verovatno da je perje eksaptacijom upotrebljeno kasnije za letenje (naravno i letenje ima svoje faze razvoja koje mu prethode). Suština je da je perje dobilo potpuno drugačiju funkciju od svoje prvobitne (grejanje tela) koju je steklo prirodnom selekcijom. Dalje, funkcija perja koje se koristi za letenje se nastavlja opet oblikovati pod selektivnim pritiskom u cilju ostvarivanja preciznije aerodinamike i boljih letačkih performansi.

Mit: Evolucija uvek optimizuje

Skoro sva hrišćanska kritika evolucije usmerena je na ekstremno naglašavanje optimizacije u evoluciji. Prirodna selekcija deluje tako da optimizuje karakteristike vrsta prema njihovom specifičnom okruženju. Medjutim, već duže vreme je poznato da ovakvo tumačenje evolucije ima ozbiljne nedostatke (ovo je inače jedan od razloga zašto je većina svih kreacionističkih i ID napada na evoluciju neubedljiva). Podsetimo se da "prirodna selekcija ne daje savršenu optimizaciju, već samo poboljšanja nad onim što je bilo ranije", više o ovome na strani 13.

"It produces the fitter not the fittest"

Darvin je takodje tvrdio da evolucija ne optimizuje osobine organizama. Umesto toga, on je naglašavao iznova i iznova da evolucija proizvodi samo "dovoljno-dobra" rešenja koje će datom organizmu omogućiti život u odredjenoj ekološkoj niši. Na primer, recimo da neki organizam prilikom rodjenja dobije blagu diferencijalnu prednost u reprodukciji u odnosu na ostale jedinke. Takva (gotovo neprimetna) prednost može biti sve što je potrebno organizmu da ostvari uspešnu penetraciju u svojoj ekološkoj niši, bez ikakve dalje potrebe za modifikovanjem ili optimizovanjem.

Mit: Evolucija je konstantno poboljšanje organizama

Još jedna česta zabluda evolucije u hrišćanskim krugovima je da se organizmi konstantno poboljšavaju tokom evolucije. Coyne lepo pojašnjava da evolucija ne mora nužno značiti da se organizmi stalno poboljšavaju (npr., str.  4, 13, 131-136). I sam Darvin je tvrdio da evolucija gradi rešenja koja su  dovoljno-dobra za preživljavanje u svojim ekološkim nišama a ne podobavezno i bolja od prethodnih. Tačnije, ništa u teoriji evolucije ne podrazumeva obavezno napredovanje od jednostavnih ka složenim oblicima života ili od nižih ka višim oblicima života. Najbolji primer su organizmi koji se i dan danas nisu bitnije menjali.

Ono što evolucija proizvodi su različiti životni oblici (diverzifikacija) od kojih je svaki prilagodjen da opstaje i da se reprodukuje u svom specifičnom okruženju. Ukoliko je organizam tako prilagodjen i ukoliko nema krupnijih promena u njegovom okruženju, takav organizam se neće bitnije "poboljšavati". Zbog toga i ne čudi što danas imamo ekosisteme gde su evolucioni pritisci minimalni (npr. ajkule koje se nisu značajnije promenile u zadnjih 25 miliona godina). Sa druge strane, u ekološkim nišama gde su evolucioni pritisci visoki, kao što je imuni sistem ljudskog organizma u kombinaciji sa širokim repertoarom antibiotika koje smo proizveli, možemo očekivati da vidimo brze promene u mikroorganizmima koji izazivaju bolesti, a to se upravo i dogadja (npr., str 130-132) . Štaviše, ne postoji ništa u evolucionoj teoriji što podrazumeva da vrsta ne može da "deevoluira" iz složenijeg ka jednostavnijim oblicima, ako je to ono što će joj omogućiti bolju prilagodjenost u datom okruženju. Primer su organizmi (najčešće crvi) koji postepeno mogu da izgube svoje oči nakon što duži niz generacija naseljavaju tamne pećine ili muljevita dna reka ili jezera. Čulo vida je energetski skup organ i posedovanje istog ukoliko živite u mulju ne daje vam apsolutno nikakvu prednost.

Slično tome, ne postoji ništa u evolucionoj teoriji što podrazumeva da su preci nekih vrsta u prošlosti trebali biti istrebljeni i dovedeni do izumiranja od strane njihovih "poboljšanih" potomačkih vrsta (iako danas imamo i previše takvih pojednostavljenih hrišćanskih kritika evolucije gde se često govori o nekakvoj vrsti zamene starog sa novim). Da li će se to dogoditi, zavisi pre svega od toga da li će predak i potomak ostati da naseljavaju iste ekološke niše i da li će postati jedan drugom konkurencija unutar svog staništa. Ukoliko se dogodi da potomci razviju osobine koje im omogućavaju da iskoriste različite resurse unutar svoje ekološke niše (one koje ne koriste njihovi preci) nema razloga da se očekuje da će predačka vrsta izumreti, pa čak niti da će biti dovedena blizu izumiranja.

Šta Coyne kaže o inteligentnom dizajnu (ID) ?

Na mnogim mestima on ističe suprotnosti izmedju teorije evolucije i inteligentnog dizajna (ID).Na primer, nauka je utvrdila da izumrle vrste predstavljaju preko 99% svih vrsta koje su ikada živele na Zemlji. To predstavlja ogroman problem za teorije inteligentnog dizajna. Ne izgleda baš tako inteligentno da dizajnirate milione vrsta koje su predodredjene da izumru i da budu zamenjene ostalima od kojih će ogromna većina takodje izumreti i nestati.

Dalje, brojni su primeri "nesavršenog dizajna", neki od primera su ptica kivi koja ima potpuno beskorisna krila. Ovde bi se mogle dodati još mnoge vrste ptica neletačica,  Afrički noj je takodje ptica neletačica. Pored njega tu je južnoamerička rea, australijski emu i naravno pignvini. Možda najbizarniji je novizelandski kakapo, debeo papagaj koji je neletač a koji živi uglavnom na terenu i oostao je veoma ugrožen jer je lak plen za mačke. Sve ove ptice neletačice imaju krila. Kod nekih (kao što je ptica kivi)  krila su veoma mala, svega par centimetara i gotovo neprimetna pod perjem, njena krila nemaju apsolutno nikakvu funkciju i postoje samo kao evolucioni ostaci.

Novozelandska ptica Kivi (Apterygidae),   krila su joj veoma mala,
skrivena pod perjem i potpuno nefunkcionalna

Dok kod drugih, kao što je noj, krila su dobila novu upotrebu. Kod pingvina su takodje pradavna krila evoluirala u peraja, što ptici omogućava da pliva pod vodom i to neverovatnom brzinom. Ono što je bitno, sve ove ptice neletačice imaju potpuno iste kosti koje možemo naći i na krilima kod ptica koje mogu da lete. A to je zato što krila neletačica nisu proizvod namernog i inteligentnog dizajna već evolucije. Uostalom, niti ima posebnog razloga da bi Tvorac koristio potpuno iste kosti na krilima koja lete i na onima koja ne lete, uključujući ovde i kosti peraja.

Medjutim, pristalice inteligentnog dizajna uvek potežu isti argument kada brane ove zakržljale organe. Oni će reći : "Ovi organi nisu beskorisni, oni imaju funkciju!" , ili još češće, "Oni nisu nepotrebni, možda mi još nismo otkrili njihovu pravu ulogu". Tvrdeći ovakve stvari, oni zaprave ne primećuju da potpuno promašuju poentu. Evoluciona teorija nigde ni ne kaže da zakržljali organi nemaju nikakvu funkciju. Organ je zakržljao, ne zbog toga što je on nefunkcionalan već zato što više ne obavlja onu funkciju za koju je evoluirao. Tu postoji bitna razlika. Autor detaljnije objašnjava i kako su neke ptice uopšte izgubile krila i kako je taj proces tekao.

Takodje objašnjava i ostale primere zakržljalih organa. Tu su i kitovi sa zakržljalim karlicama, a tu je i povratni grkljanski živac (engl. recurrent laryngeal nerve) (str. 81-85).

Dalje, autor ovde polako ulazi i u oblast teologije. Objašnjavajući kako pristalice inteligentnog dizajna najčešće izbegavaju pokušaje da identifikuju samog "Dizajnera" , zapravo oni njega uvek vide i opisuju tražeći Boga a ne bilo kakvog drugog visoko-inteligentnog dizajnera. Coyne otvoreno identifikuje ovu vezu i tumači je kroz realne primere.

Odnos kreacionizma i evolucije na početku 21. veka

Ako su ljudi samo jedan od mnogobrojnih rezultata prirodne selekcije, možda uopšte i nismo toliko specijalni koliko mislimo? Možete da zamislite zašto ovo pitanje toliko pogadja mnoge ljude koji misle da smo nastali na poseban i drugačiji način a ne od životinja. Da li naša egzistencija ima ikakvu svrhu ili smisao koji nas razlikuje od drugih bića? Za evoluciju mnogi misle da ugrožava moral. Ako, nakon svega, mi jesmo ništa drugo osim zveri, zašto se onda ne bismo i ponašali kao zveri? Šta nas to može držati moralnima ako nismo ništa više od majmuna sa malo većim mozgom? Ni jedna druga naučna naučna teorija ne doživljava tako jak psihološki otpor.

Jasno je da je najveći deo ovog otpora potiče uglavnom od religije. Vi možete naći religiju bez kreacionizma, ali nikada, nećete naći kreacionizam bez religije. Mnoge religije ne samo da smatraju ljude posebnim, već oštro negiraju evoluciju tvrdeći da smo mi, kao i druge vrste, bili predmet trenutnog stvaranja od strane božanstva. Iako su mnogi religiozni ljudi ipak pronašli način da u svojoj glavi pomire nekako evoluciju sa svojim duhovnim verovanjima, takvo pomirenje na žalost nije moguće ako želite da se doslovce pridržavate opisa stvaranja onako kako ga opisiju neke religije.

Zbog ovoga je otpor prema evoluciji i dalje veoma jak, pogotovo u SAD i Turskoj, gde su uticajna fundamentalistička verovanja. Statistike najbolje pokazuju koliko jak otpor smo u stanju da pružamo  prihvatanju sasvim jednostavnih i očiglednih naučnih činjenica o evoluciji. Uprkos obilju neoborivih dokaza evolucije iz godine u godinu ankete pokazuju da su recimo Amerikanci, posebno depresivno sumnjičavi prema ovoj grani biologije. Godine 2006, na primer, anketa sprovedena na odraslim osobama u 32 države SAD zatražila je da odgovore na tvrdnju, "Ljudska bića, kao što znamo, razvila su se iz ranijih vrsta životinja", odgovor je trebao biti jedan od 3 moguća : smatram da je istina, nije istina ili nisam siguran.

Svega 40% ispitanika - četiri od deset ljudi - je reklo da smatra da je izjava istinita (što je 5% manje u odnosu na 1985. godinu). Ova brojka je gotovo slična sa brojkom onih koji se ne slažu i koji smatraju da je izjava lažna (39%). A ostalih, 21%, jednostavno nisu sigurni. Ovo postaje još zanimljivije kada uporedimo ove statističke podatke sa onima iz drugih zapadnih zemalja. Od ukupno trideset i jedne nacije, jedino Turska, koja je prepuna verskog fundamentalizma, rangirana je niže u prihvatanju evolucije (25% prihvata, 75% ne prihvata). Evropljani, s druge strane, imaju mnogo bolji rezultat, sa preko 80% Francuza, Skandinavaca i Islandjana koji smatraju evoluciju kao istinitu. U Japanu, 78% ljudi se slaže da je čovek evoluirao.

Medjutim, kod evolucije se ne radi o pukom odlučivanju da li je ona istinita ili nije. Da bi čovek bio u stanju da odgovori na to pitanje on mora imati barem neko osnovno predznanje o njoj i šta one uopšte predstavlja. Problem je što evoluciija u nekim zemljama sveta (medju kojima je i SAD) nema čak ni tu mogućnost, ona je nekada branjena da se predaje u državnim školama. Skoro dve trećine Amerikanaca smatra da ako se evolucija predaje u školskim učionicama, onda bi trebao i kreacionizam. Nije iznenadjujuć toliki broj Amerikanaca koji smatra da je ona neistinita ako uzmemo samo u obzir da 12% (jedan od osam) ljudi misli da se evolucija treba učiti bez pominjanja kreacionizma kao nekakve alternative.

Iznenadjuje i to što se takav princip "učiti u školi i jedno i drugo" postepeno širi i na ostale zemlje, uključujući Nemačku i Veliku Britaniju. Primera radi, u Velikoj Britaniji, 2006. godine u anketi BBC-a  2.000 ljudi je upitano da opiše svoje vidjenje o tome kako se život formirao i razvio. Dok 48% prihvata evolucioni pogled, 39%  se opredelilo za kreacionizam ili inteligentni dizajn (ID), dok 13% ne zna. Više od 40% ispitanika smatra da bi se kreacionizam ili inteligentni dizajn trebalo učiti na časovima nauke u državnim školama. To više uopšte nije toliko daleko od statistike u SAD. Danas, neke škole u ​​Velikoj Britaniji predaju inteligentni dizajn kao alternativnu opciju evoluciji.

Uz evangelističko hrišćanstvo koje stiče uporište u kontinentalnoj Evropi, i muslimanskog fundamentalizma koji se širi kroz bliski istok, kreacionizam i dalje stiče dosta novih pristalica. Ono što je ironija, kreacionizam je čak osnovao uporište i na arhipelagu Galapagos. Tu, na samom zemljištu koje simbolizuje evoluciju, na čuvenim ostrvima koja su inspirisala Darvina, sada postoji adventistička škola i predaje naučno neutemeljenu kreacionističku biologiju deci razne veroispovesti.

Pored njenog sukoba sa fundamentalističkim religijama, mnogo konfuzije i nerazumevanja okružuje evoluciju zbog jednostavnog nedostatka svesti o težini i raznovrsnosti dokaza. Nesumnjivo je da neki ljudi jednostavno nisu zainteresovani. Ali kako autor tvrdi postoji i drugi problem, to je nedostatak informacija. Mnogi od njegovih kolega biologa su neupućeni u mnoge linije evolucionih dokaza, čak i većina studenata, koji su navodno saznali za evoluciju još u srednjoj školi, i dolaze na kurseve, ne znaju gotovo ništa o toj centralnoj teoriji biologije. Uprkos široko rasprostranjenom kreacionizmu i njegovom nedavnom potomku, inteligentnom dizajnu, popularna štampa ne pruža gotovo nikakvu pozadinu zašto naučnici prihvataju evoluciju. Nije ni čudo, da mnogi ljudi postaju plen retorike kreacionista i njihovog namernog demoniziranja Darvinizma.

Iako je Darvin bio prvi koji je sastavio i prikupio dokaze za teoriju evolucije, od njegovog vremena naučna istraživanja su strahovito odmakla. U Darvinovo vreme DNK još nije ni bila otkrivena, a danas ta ista DNK otkriva okeane novih i novih dokaza koji dokazuju da je evolucija još u toku. U ovoj knjizi se prepliću mnoge teme iz naučnog rada na polju genetike, paleontologije, geologije, molekularne biologije, anatomije, i razvojne biologije koji ukazuju na "neizbrisiv pečat" evolucije, pečat koji je prvi predložio Darvin a što je jedan od ključnih razloga zašto je njegovo ime toliko pominjano danas.

Seksualna selekcija i genetika

Poglavlja 5, 6 i 7 pokrivaju klasične neontološke argumente (neontologija je oblast biologije koja se za razliku od paleontologije ne bavi bavi pradavnim organizmima, već onima koji danas postoje, tj. skorašnjim organizmima). Ti argumenti obuhvataju argumente iz genetike, teorije nastanka vrsta, i brojne dokaze koje su biolozi dokumentovali u proteklom veku. To je prava snaga ove knjige, jer Coyne i jeste specijalista u ovim oblastima, i ovde se zaista pokazuje njegovo poznavanje "terena". Medju ovim temama je i provokativna rasprava o tome "kako seks upravlja evolucijom", ažuriranje i dopuna argumenata klasične seksualne selekcije koju je Darvin prvi put predstavio, a koja je posebno pojačana radovima genetičara koji su otkrili koliko važan uticaj imaju seksualne rekombinacije na genetičke varijacije i specijacije.

Pretposlednje poglavlje se bavi pitanjem koje najviše uzbudjuje kreacionistički pokret - ljudskom evolucijom. Coyne predstavlja kratak ali jasan pregled svih dokaza iz ljudske anatomije, paleontologije i genetike koje čine našu vezu sa životinjskim carstvom (a naročito carstvom velikih majmuna).

U svom završnom poglavlju, "Evolution Redux" Coyne razmatra neke od glavnih implikacija evolucije, od filozofskih razloga zašto naučnik može reći "evolucija je istinita," do sasvim novih polja evolucione psihologije, sa implikacijama evolucije za širi pogled na svet. Neka vas ne iznenadi što često voli da ubacije kreacionističke tvrdnje unutar poglavlja jer ne samo da želi da raskrinkava većinu njihovih argumenata, već pažljivo uverava čitaoca da sam dodje do zaključka nakon ogromne količine jakih dokaza da se evolucija zaista dogodila. Kao zaključak izdvojićemo pasus sa 222 strane :


Every day, hundreds of observations and experiments pour into the hopper of the scientific literature… and every fact that has something to do with evolution confirms its truth. Every fossil that we find, every DNA molecule that we sequence, every organ system that we dissect supports the idea that species evolved from common ancestors.

Despite innumerable possible explanations that could prove evolution untrue, we don’t have a single one. We don’t find mammals in Precambrian rocks, humans in the same layers as dinosaurs, or any other fossils out of evolutionary order. DNA sequencing supports the evolutionary relationships of species originally deduced from the fossil record.

And, as natural selection predicts, we find no species with adaptations that benefit only a different species. We do find dead genes and vestigial organs, incomprehensible under the idea of special creation. Despite a million chances to be wrong, evolution always comes up right. That is as close as we can get to a scientific fact.


Sve u svemu, Coynova knjigica ima predivno uravnotežen pristup čitaocima, blaga i bez bespotrebnog napadanja kreacionizma, smireno i edukativno štivo za nekoga ko još možda sedi na ogradi izmedju evolucije i kreacionizma. Naravno, kreacionisti će verovatno mrzeti knjigu  (sudeći po brojnim komentarima širom interneta, mnogi su već pokušali da diskredituju autora i slično). No, bez obzira na sve, za nekog čiji um još nije zamagljen verskom dogmatikom knjiga može biti i više nego korisna.